

Tindak Balas Reseptor Seperti Tol Terhadap Jangkitan Virus Hepatitis B Dan Potensi Agonis TLR Sebagai Imunomodulator Untuk Merawat Hepatitis B Kronik: Gambaran Keseluruhan Bahagian 1
Jun 21, 2023
Abstrak:
Jangkitan virus hepatitis B kronik (HBV) kekal sebagai masalah kesihatan global yang utama. Imunopatologi penyakit ini, terutamanya interaksi antara HBV dan imuniti semula jadi perumah, kurang difahami. Selain itu, kesusasteraan yang tidak konsisten mengenai HBV dan imuniti semula jadi tuan rumah telah membawa kepada kontroversi. Walau bagaimanapun, baru-baru ini, terdapat peningkatan dalam bilangan kajian yang telah menyerlahkan hubungan antara tindak balas imun semula jadi, termasuk reseptor seperti Tol (TLR), dan jangkitan HBV kronik.
TLR ialah molekul penderiaan utama yang mengesan corak molekul berkaitan patogen dan mengawal induksi sitokin pro dan anti-radang, dengan itu membentuk imuniti adaptif. Penindasan tindak balas TLR telah dilaporkan pada pesakit dengan hepatitis B kronik (CHB), serta dalam model lain, termasuk shrews pokok, mencadangkan persatuan tindak balas TLR dalam kronik HBV. Selain itu, agonis TLR telah dilaporkan meningkatkan tindak balas imun semula jadi hos terhadap jangkitan HBV, menonjolkan potensi agonis ini sebagai imunomodulator untuk meningkatkan rawatan CHB. Dalam kajian ini, kita membincangkan pemahaman semasa tentang tindak balas imun semula jadi hos semasa jangkitan HBV, terutamanya memberi tumpuan kepada tindak balas TLR dan agonis TLR sebagai imunomodulator.
Jangkitan virus hepatitis B kronik (HBV) boleh menjejaskan sistem imun. Jangkitan HBV menyekat tindak balas sistem imun terhadap virus, mengakibatkan jangkitan kronik.
Pada pesakit dengan hepatitis B kronik, imuniti ditindas. Ini disebabkan oleh serangan virus terhadap sel imun dan tindak balas keradangan yang disebabkan oleh jangkitan. Sistem imun pesakit mungkin tidak dapat bertindak balas dengan berkesan terhadap virus, menyebabkan virus itu berterusan di dalam badan.
Dari segi rawatan, pengubah imun boleh meningkatkan imuniti pesakit dan membantu mereka membersihkan virus. Walau bagaimanapun, ubat-ubatan ini juga boleh menyebabkan sistem imun yang terlalu aktif, yang boleh menyebabkan penyakit autoimun.
Kesimpulannya, terdapat interaksi yang kompleks antara jangkitan HBV kronik dan imuniti. Strategi terapeutik untuk memperlahankan replikasi virus dan meningkatkan imuniti harus digabungkan dengan rawatan individu untuk mencapai kesan terapeutik yang terbaik. Dari sudut ini, kita perlu meningkatkan imuniti kita. Cistanche mempunyai kesan meningkatkan imuniti dengan ketara. Abu daging mengandungi pelbagai komponen aktif secara biologi, seperti polisakarida, dua cendawan, Huang Li, dll. Bahan-bahan ini boleh merangsang daging. Pelbagai jenis sel sistem imun, meningkatkan aktiviti imun mereka.

Klik manfaat cistanche tubulosa
Kata kunci:
virus hepatitis B; kronik; jangkitan; reseptor seperti tol; Agonis TLR.
1. Pengenalan
Jangkitan virus Hepatitis B (HBV), yang menyebabkan hepatitis kronik, sirosis hati, dan karsinoma hepatoselular (HCC), kekal sebagai masalah kesihatan global utama walaupun terdapat vaksin pencegahan yang berkesan untuk HBV [1,2]. Menurut anggaran baru-baru ini, 296 juta orang terjejas oleh jangkitan HBV kronik pada 2019, dengan 1.5 juta jangkitan baharu tahunan [3]. Rawatan semasa melibatkan pemberian interferon alpha pegylated (Peg-IFN-) dan analog nukleus (t)ide (NAs), termasuk tiga analog nukleosida (lamivudine, entecavir, dan telbivudine) dan tiga analog nukleotida (adefovir, tenofovir disoproxil, dan tenofovir alafenamide). Walau bagaimanapun, ubat-ubatan ini hanya boleh menyekat replikasi HBV; mereka tidak boleh menghapuskan jangkitan HBV, kebanyakannya kerana sifat berterusan DNA bulat tertutup kovalen (cccDNA) dan/atau DNA HBV bersepadu dalam hepatosit [4].
HBV ialah virus DNA pekeliling santai (cDNA) yang diselubungi, bulat dan separa bertali dua [5]. HBV tergolong dalam keluarga Hepadnaviridae, yang mengandungi genom kira-kira 3.2 kb dengan empat bingkai bacaan terbuka bertindih, mengekod tujuh protein, termasuk polimerase, teras, pra-teras, tiga protein sampul/permukaan (besar, tengah dan kecil), dan Protein X [6–8]. Sampul dan protein teras adalah protein struktur, manakala X dan polimerase adalah protein bukan struktur [8]. Natrium taurocholate co-transporting polypeptide (NTCP) telah ditunjukkan sebagai reseptor kemasukan untuk HBV [9], dan interaksinya adalah khusus hos [10]. Satu siri peristiwa yang kompleks berlaku antara virus dan sistem imun hos, yang menentukan hasil jangkitan [11].
Begitu juga, hasil jangkitan HBV sebahagian besarnya bergantung kepada interaksi virus-hos, di mana, dalam 95 peratus daripada orang dewasa imunokompeten jangkitan itu dibersihkan, tetapi lebih 90 peratus daripada neonatus yang dijangkiti ini gagal dan mereka mengalami jangkitan kronik [12,13]. ]. Jangkitan HBV kronik dikesan melalui ekspresi berterusan antigen permukaan hepatitis B (HBsAg) selama sekurang-kurangnya 6 bulan selepas jangkitan awal. Terdapat data yang tidak konsisten tentang interaksi hos HBV, terutamanya tindak balas imun semula jadi. Sebagai contoh, kekurangan tindak balas imun semula jadi, termasuk induksi interferon (IFN) dan gen yang dirangsang IFN (ISG), dalam cimpanzi akut yang dijangkiti HBV [14] model woodchuck jangkitan HBV [15] dan pesakit dengan jangkitan HBV [ 16] menyerlahkan HBV sebagai virus siluman. Satu kajian baru-baru ini menunjukkan bahawa HBV kekal tidak dapat dilihat oleh reseptor pengecaman corak (PRRs) [17], yang mungkin disebabkan oleh keupayaan protein HBV untuk menghalang atau mengelak sistem imun semula jadi hos [18-22]. Terutama, dalam kajian terdahulu kami, kami melihat penindasan ketara faktor pengawalseliaan interferon 7 (IRF-7) dan ISG15, serta tiada peningkatan dalam pengeluaran IFN pada 1- atau 3-hari. pasca jangkitan dalam model shrew pokok [23], yang menunjukkan perencatan tindak balas imun semula jadi pada peringkat awal jangkitan dalam model ini.

Walau bagaimanapun, biasanya sukar untuk mengenal pasti titik masa yang tepat bagi jangkitan awal perumah, yang menjadikannya sukar untuk mencirikan peringkat awal jangkitan HBV. Selain itu, perbezaan dalam tindak balas imun semula jadi, yang mungkin disebabkan oleh perbezaan genotip HBV, keadaan jangkitan, atau genetik perumah, sebahagian besarnya masih tidak ditentukan. Walau bagaimanapun, banyak kajian baru-baru ini telah menunjukkan penderiaan HBV oleh PRR, termasuk reseptor seperti Tol (TLR) [24,25]. Tindak balas imun semula jadi memainkan peranan penting sebagai barisan pertama pertahanan imun terhadap banyak jangkitan virus [26]. TLR, reseptor seperti gen I (RIG-I) boleh diinduksi asid retinoik (RLR), domain oligomerisasi pengikat nukleotida (NOD) - seperti reseptor (NLR) dan reseptor lektin jenis C memainkan peranan penting dalam mengesan patogen yang menyerang. , termasuk virus, dan memulakan tindak balas imun semula jadi. Ini membawa kepada sintesis IFN dan sitokin melalui beberapa laluan isyarat yang berbeza, dengan itu mengehadkan jangkitan dan menggalakkan tindak balas imun adaptif [27,28].
Walaupun peranan imuniti adaptif dalam mengawal jangkitan HBV didokumentasikan dengan baik, peranan imuniti semula jadi dalam hal ini masih belum banyak diterokai [18]. Selain itu, mekanisme di sebalik tindak balas imun khusus HBV [29] masih perlu disiasat, yang mungkin membuka jalan untuk pembangunan strategi baru untuk rawatan jangkitan HBV kronik. TLR ialah molekul utama imuniti semula jadi yang dipelihara secara evolusi, yang terlibat dalam pengesanan awal mikroorganisma penceroboh dengan mengesan corak molekul berkaitan patogen (PAMP) [30-32]. TLR ialah protein transmembran jenis I yang mengandungi tiga domain: domain ulangan yang kaya dengan leucine ekstraselular yang mengiktiraf PAMP tertentu, domain transmembran tunggal dan domain reseptor Toll-interleukin 1 intrasel yang diperlukan untuk transduksi isyarat hiliran [33,34]. Isyarat TLR terlibat dalam pengawalan kedua-dua sitokin pro dan anti-radang dan menghubungkan imuniti semula jadi dan adaptif awal [35]. Beberapa kajian telah menunjukkan persatuan isyarat pengantara TLR dengan mekanisme antivirus dan penindasan replikasi HBV [36,37], serta penindasan tindak balas TLR dengan kegigihan HBV [38].
Oleh itu, pengaktifan tindak balas imun semula jadi oleh agonis TLR mungkin memainkan peranan penting dalam memodulasi hasil jangkitan HBV kronik. Selain itu, TLR adalah molekul pencetus penting dalam mengaktifkan imuniti terlatih dan boleh digunakan sebagai pembantu vaksin [39-42]. Dalam kajian terdahulu, fenomena imuniti terlatih pada bayi baru lahir ibu yang dijangkiti HBV telah dilaporkan [43]. Oleh itu, penggunaan agonis TLR sebagai terapeutik/vaksin khusus HBV boleh disiasat untuk meningkatkan tindak balas imun terhadap jangkitan kronik. Dalam kajian ini, kami telah membincangkan pemahaman semasa kami tentang interaksi hos HBV dengan memberi tumpuan kepada interaksi TLR-HBV semasa jangkitan kronik dalam model manusia dan haiwan. Di samping itu, kami juga telah menangani potensi imunomodulator agonis TLR untuk meningkatkan tindak balas imun semula jadi hos semasa jangkitan HBV kronik.
2. Tindak Balas TLR terhadap Jangkitan HBV
Walaupun tindak balas imun semula jadi semasa fasa awal jangkitan HBV dianggap boleh diabaikan, peningkatan bilangan kajian telah menunjukkan bahawa jangkitan HBV memodulasi tindak balas imun semula jadi, termasuk tindak balas TLR [38]. HBV mempunyai julat perumah yang terhad, secara semula jadi menjangkiti manusia dan cimpanzi, dan pada tahap tertentu, cerek pokok [44-46], yang juga mengehadkan kajian tindak balas imun awal jangkitan HBV. Dalam kajian terdahulu, Isogawa et al. melaporkan induksi IFN- / dalam hati tikus transgenik HBV dalam masa 24 jam suntikan intravena tunggal agonis TLR3, 4, 5, 7, dan 9, yang menghalang replikasi HBV [37], mencadangkan peranan anti-HBV TLR ini. Kawalan pengantaraan TLR terhadap replikasi HBV menggunakan agonis TLR juga telah ditunjukkan dalam sel hati bukan parenkim tikus [47].
Ekspresi transkrip TLR yang sangat rendah, termasuk TLR1, 2, 4, dan 6, diperhatikan dalam sel mononuklear darah periferal (PBMC) yang diperoleh daripada pesakit dengan hepatitis B kronik (CHB). Sel-sel juga menunjukkan tindak balas sitokin terjejas selepas rangsangan dengan agonis TLR2 dan TLR4, yang dikaitkan dengan tahap HBsAg plasma pesakit [48], mencadangkan kemungkinan interaksi antara isyarat HBsAg dan TLR. Kajian lain menunjukkan bahawa selepas rangsangan dengan ligan untuk TLR2, TLR3 dan TLR9 pada PBMC yang diperoleh daripada kanak-kanak dengan jangkitan HBV kronik, terdapat peningkatan dalam pengeluaran IL-6, CCL3 dan CXCL10 [49], yang menunjukkan induksi tindak balas keradangan yang dimediasi TLR.

Walau bagaimanapun, pada rangsangan dengan ligan untuk TLR2, TLR3, dan TLR4, PBMC daripada kanak-kanak dengan CHB menunjukkan pengeluaran IFN yang jauh lebih rendah berbanding daripada kanak-kanak yang sihat [49], mencadangkan tindak balas IFN yang ditindas. Ekspresi molekul isyarat TLR yang berkurangan dengan ketara, termasuk IRAK4, TRAF3, dan IRF7, didapati dalam PBMC pesakit dengan CHB, berbanding dengan kawalan sihat [50], mencadangkan tindak balas imun terjejas dalam jangkitan HBV kronik. Variasi genetik dalam gen TLR3 didapati mempengaruhi hasil jangkitan HBV [51,52], menonjolkan penglibatan TLR3. Penurunan ekspresi kedua-dua mRNA dan protein TLR7 diperhatikan dalam PBMC yang diperoleh daripada pesakit dengan CHB, berbanding dengan kawalan sihat; Walau bagaimanapun, ekspresi mRNA TLR9 menurun tetapi paras protein TLR9 meningkat diperhatikan pada pesakit dengan CHB, yang dikaitkan dengan DNA HBV serum mereka, mencadangkan kemungkinan hubungan antara ekspresi protein TLR9 dan replikasi HBV [53]. Dalam kajian lain, ekspresi kedua-dua mRNA dan protein TLR9 didapati dikurangkan dalam PBMC daripada pesakit dengan CHB [54], menonjolkan persatuan TLR9 dengan jangkitan HBV.
Kajian terdahulu melaporkan penurunan pengeluaran IFN- oleh pDC daripada pesakit dengan CHB, yang merupakan tindak balas kepada loxoribine, ligan untuk TLR7, dan CpG ODN, ligan untuk TLR9 [55]. Selain itu, beberapa kajian telah melaporkan korelasi songsang antara bilangan pDC dan ungkapan TLR9 dalam pDC dengan beban HBV serum [55,56], mencadangkan peranan antivirus TLR9 dalam jangkitan HBV. Kajian terdahulu melaporkan penindasan pengeluaran IFN yang disebabkan oleh TLR9-oleh DC plasmacytoid yang diperoleh daripada pesakit positif HBeAg dengan CHB [57]. Di samping itu, kajian baru-baru ini menunjukkan nilai ramalan pDC dan TLR9 dalam pesakit HBeAg-positif dengan CHB; selepas rawatan IFN, ekspresi pengantara pDC bagi antigen sel dendritik darah 2 (BDCA-2), dan ekspresi transkrip seperti immunoglobulin 7 (ILT7) dan mRNA TLR9 telah meningkat dengan ketara dalam kumpulan tindak balas berbanding dengan yang dalam kumpulan bukan responden [58].
Sama seperti pesakit dengan CHB, analisis transkriptik model woodchuck CHB juga mendedahkan tindak balas IFN jenis intrahepatik I yang terhad [59]. Dalam model woodchuck hepatitis kronik, trend menindas ekspresi TLR dilaporkan dalam hepatosit, berbanding dengan haiwan yang sihat, mencadangkan kemerosotan tindak balas imun semula jadi dalam jangkitan kronik [60]. Walau bagaimanapun, kajian baru-baru ini menunjukkan peranan TLR2 dalam penyelesaian jangkitan HBV dalam model woodchuck hepatitis [61]. Dalam kajian terdahulu kami, kami mendapati penindasan ketara terhadap tindak balas IFN pada 31 minggu selepas jangkitan dalam model shrew pokok [62], yang mungkin menyumbang kepada kronik.
Selain itu, TLR3 tidak diinduksi dan TLR9 telah ditindas [62]. Terutama, kajian terdahulu juga melaporkan penurunan ekspresi TLR9 dalam CD14 periferal ditambah monosit yang dikumpulkan daripada pesakit dengan CHB [63]. Walaupun mekanisme itu masih tidak diketahui, kajian terdahulu melaporkan bahawa responden kepada IFN pegylated dan mereka di bawah rawatan ETV menunjukkan pemulihan ekspresi TLR9, mencadangkan peranan TLR9 dalam perencatan HBV [63]. Begitu juga, kajian terdahulu menunjukkan pengurangan dalam ekspresi TLR3 dalam PBMC dan sel hati pesakit dengan CHB berbanding kawalan sihat, yang dipulihkan oleh terapi IFN, mencadangkan peranan TLR3 dalam perencatan HBV [64]. TLR2 dan 4 boleh menghalang replikasi HBV dalam cara bebas IFN dengan mengaktifkan laluan MAPK dan PI-3 K/Akt dalam hepatosit [36]. Terutama, kajian baru-baru ini menunjukkan penderiaan HBV dan induksi tindak balas imun anti-HBV melalui isyarat TLR2 selepas jangkitan dalam hepatosit manusia primer (PHH) [25], model jangkitan HBV in vitro yang disahkan [65]. Ekspresi TLR2 yang ditindas telah diperhatikan dalam jangkitan HBV kronik [66,67], dengan penurunan ketara pengeluaran TNF- dan IL-6 [66].
Di samping itu, kajian baru-baru ini menunjukkan persatuan TLR2 dalam pengawalseliaan tindak balas sel T helper 17 (Th17) dalam jangkitan HBV [68]. Menggunakan model tetikus HBV, kajian terbaru yang lain telah menunjukkan peranan isyarat TLR dalam meningkatkan tindak balas CD8 ditambah T-sel khusus HBV, yang mengawal jangkitan [25,69]. Satu lagi kajian melaporkan pengurangan ekspresi TLR7 dalam sel HepG2.2.15 yang mereplikasi HBV dan sampel biopsi hati daripada pesakit dengan CHB; hubungan songsang antara beban DNA HBV dan ekspresi TLR7 dalam sampel biopsi telah diperhatikan [70], menonjolkan peranan antivirus TLR7 dalam jangkitan HBV, yang selanjutnya disahkan oleh penindasan replikasi HBV dalam sel HepG2.2.15 oleh agonis TLR7, R837 [ 70]. Dalam tikus transgenik HBV, asid lemak tepu (SFA), ligan berpotensi untuk TLR4, ditunjukkan untuk mempercepatkan isyarat TLR4, yang menghalang replikasi HBV dalam jangkitan CHB dengan penyakit hati berlemak bukan alkohol [71], mencadangkan peranan antivirus TLR4 terhadap Jangkitan HBV. Peranan tindak balas imun semula jadi dalam menghalang replikasi HBV juga telah ditunjukkan dalam model tetikus hidrodinamik HBV, di mana inokulasi intraperitoneal agonis STING, 5,6-dimetilxantenon-4-asid asetik (DMXAA), diinduksi IFN jenis I yang mengurangkan perantaraan replikasi DNA HBV dalam hati tikus [72].
Dalam hepatosit tetikus yang menyokong replikasi HBV, pengaktifan STING dengan sama ada cGAMP atau agonis STING mengurangkan DNA virus dengan ketara dalam STING dan Janus kinase-1-cara bergantung [73]. Secara keseluruhan, penemuan ini menunjukkan bahawa imuniti semula jadi memainkan peranan penting dalam perencatan replikasi HBV; bagaimanapun, kajian lanjut diperlukan untuk meneroka mekanisme. Interaksi TLR dalam model jangkitan HBV yang berbeza ditunjukkan dalam Rajah 1 (Rajah 1A-F), yang menunjukkan peranan penting tindak balas TLR dalam menghalang jangkitan HBV. Dalam hal ini, kami juga telah menunjukkan perkaitan TLR dengan molekul lain, termasuk IRAK4, TRAF3, dan IRF7 dalam aruhan IL-6, CCL3 dan CXCL10 [36,49,74] (Rajah 1G). Oleh itu, pemahaman yang betul tentang tindak balas TLR dalam jangkitan HBV adalah penting untuk campur tangan terapeutik atau pencegahan yang berjaya. Juga, potensi agonis TLR, terutamanya agonis untuk TLR7, 8, dan 9 sedang disiasat dalam beberapa ujian klinikal, yang kelihatan menjanjikan sebagai imunomodulator untuk meningkatkan tindak balas imun hos [74], akan dibincangkan di bahagian akhir kajian.
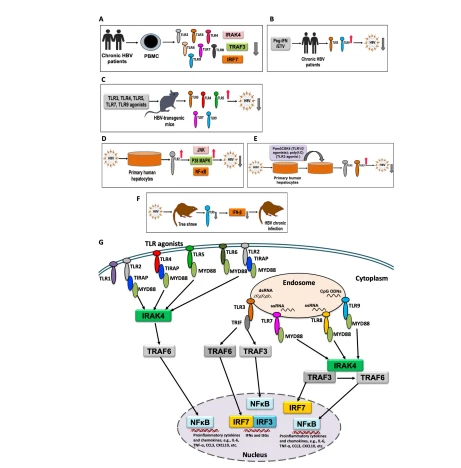
Rajah 1. Gambaran keseluruhan tindak balas TLR dalam model jangkitan HBV yang berbeza. (A) Penindasan TLR dan komponen penyesuainya pada pesakit dengan jangkitan HBV kronik. (B) Pemulihan dan tindak balas anti-HBV TLR pada pesakit dengan jangkitan HBV kronik selepas terapi Peg-IFN atau ETV. (C) Induksi tindak balas TLR dengan menggunakan agonis TLR dan perencatan replikasi HBV dalam tikus transgenik HBV. (D) Perencatan HBV oleh TLR2 dan komponen isyarat hiliran dalam hepatosit manusia primer (PHH) yang dijangkiti HBV. (E) Tindak balas anti-HBV TLR2 dan TLR3 selepas menggunakan agonis TLR1/2 dan TLR3 dalam PHH yang dijangkiti HBV. (F) Penindasan ekspresi TLR9 dan sitokin hiliran semasa jangkitan HBV kronik dalam model shrew pokok. (G) Kartun yang menunjukkan hubungan TLR dengan molekul isyarat lain, termasuk IRAK4, TRAF3 dan IRF7 dalam aruhan IL-6, TNF- , CCL3 dan CXCL10. Selepas pengaktifan TLR oleh ligan TLR masing-masing, molekul penyesuai Rajah 1.

Gambaran keseluruhan tindak balas TLR dalam model jangkitan HBV yang berbeza. (A) Penindasan TLR dan komponen penyesuainya pada pesakit dengan jangkitan HBV kronik. (B) Pemulihan dan tindak balas anti-HBV TLR pada pesakit dengan jangkitan HBV kronik selepas terapi Peg-IFN atau ETV. (C) Induksi tindak balas TLR dengan menggunakan agonis TLR dan perencatan replikasi HBV dalam tikus transgenik HBV. (D) Perencatan HBV oleh TLR2 dan komponen isyarat hiliran dalam hepatosit manusia primer (PHH) yang dijangkiti HBV. (E) Tindak balas anti-HBV TLR2 dan TLR3 selepas menggunakan agonis TLR1/2 dan TLR3 dalam PHH yang dijangkiti HBV. (F) Penindasan ekspresi TLR9 dan sitokin hiliran semasa jangkitan HBV kronik dalam model shrew pokok. (G) Kartun yang menunjukkan hubungan TLR dengan molekul isyarat lain, termasuk IRAK4, TRAF3 dan IRF7 dalam aruhan IL-6, TNF- , CCL3 dan CXCL10. Selepas pengaktifan TLR oleh ligan TLR masing-masing, molekul penyesuai diambil, dan melalui laluan isyarat hiliran sitokin proinflamasi, kemokin, IFN, dan ISG diaktifkan dan dihasilkan.
For more information:1950477648nn@gmail.com


