Menyasarkan Kanser Prostat Lanjutan Dengan Sel T Reseptor Antigen Chimeric STEAP1 Dan Imunoterapi IL-12 Tumor setempat
Sep 18, 2023
Enam antigen epitelium transmembran prostat 1 (STEAP1) ialah antigen permukaan sel untuk penyasaran terapeutik dalam kanser prostat. Di sini, kami melaporkan ungkapan luas STEAP1 berbanding dengan antigen membran khusus prostat (PSMA) dalam kanser prostat metastatik maut dan perkembangan terapi sel T reseptor antigen chimeric (CAR) STEAP{4}}. Sel T CAR STEAP1 menunjukkan kereaktifan dalam ketumpatan antigen yang rendah, aktiviti antitumor merentas model kanser prostat metastatik dan keselamatan dalam model tetikus STEAP1 manusia. Melarikan diri antigen STEAP1 ialah mekanisme rintangan rawatan berulang dan dikaitkan dengan pemprosesan dan pembentangan antigen tumor yang berkurangan. Penggunaan terapi interleukin{11}} (IL{12}}) setempat tumor dalam bentuk protein gabungan domain pengikat kolagen (CBD)-IL-12 digabungkan dengan terapi sel T CAR STEAP1 meningkatkan keberkesanan antitumor dengan membentuk semula persekitaran mikro tumor yang sejuk secara imunologi kanser prostat dan memerangi pelepasan antigen STEAP1 melalui penglibatan imuniti perumah dan penyebaran epitope.

Tumbuhan cistanche herba Cina-Antitumor
Metastatic prostate cancer represents an incurable disease responsible for over 33,000 deaths per year in the United States1. Prostate cancer is critically reliant on androgen receptor (AR) signaling and thus the suppression of gonadal androgen production through surgical or chemical castration (androgen deprivation therapy) has been a mainstay of treatment for advanced disease. However, metastatic prostate cancer inevitably develops resistance to androgen deprivation therapy and enters a stage called metastatic castration-resistant prostate cancer (mCRPC). mCRPC is currently incurable and is considered the end stage of the disease and is associated with a median overall survival of three years2. In the past decade, multiple therapies including an inhibitor of extragonadal androgen synthesis (abiraterone acetate)3, second-generation AR antagonists (enzalutamide)4, radioactive isotope (radium-223)5, and a prostate-specific membrane antigen (PSMA)-specific radioligand therapy (lutetium Lu 177 via votide tetraxetan)6 have been approved for mCRPC. Each of these agents extends survival on average by several months but long-term remissions are rare. Strategies to reprogram the immune system to combat prostate cancer first gained traction with the clinical approval of the dendritic cell vaccine sipuleucel-T for asymptomatic mCRPC7. More recently, several types of immunotherapies including immune checkpoint inhibitors, a DNA cancer vaccine, antibody-drug conjugates (ADC), T cell engaging bispecific antibodies (T-BsAb), and chimeric antigen receptor (CAR) T cell therapies have been under active clinical investigation8,9. CARs are synthetic receptors that leverage the potency, expansion, and memory of T cells and can be engineered against virtually any tumor-associated cell surface antigen. The adoptive transfer of CAR T cells has rapidly become an established treatment for hematologic malignancies with exceptional response rates leading to six clinical approvals in the last five years10. In contrast, CAR T cell therapies targeting solid tumors have lagged due to additional challenges related to the lack of bona fide tumor-specific antigens, inhospitable tumor microenvironments, and poor trafficking, persistence, and expansion of CAR T cells11. Despite the challenges observed in driving effective immune responses toward solid tumors, recent early-phase clinical trials investigating CAR T cell therapies targeting PSMA in mCRPC have reported safety and evidence of significant biochemical and radiographic responses12,13. These preliminary results serve to embolden efforts to develop and optimize new CAR T cell therapies for prostate cancer. While PSMA is the preeminent target for therapeutic and diagnostic development in prostate cancer, recent work indicates that PSMA expression may be quite heterogeneous in mCRPC14. Tumor antigen heterogeneity, especially in the context of single antigen-targeted CAR T cell therapies for solid tumors like prostate cancer, is an important barrier to therapeutic efficacy15. Thus, identifying cell surface antigens with broad and relatively homogeneous expression in prostate cancer is imperative. In addition, very few if any tumor-associated antigens demonstrate tumor-restricted expression—most also exhibit low-level expression in normal tissues that could represent liabilities for CAR T cell therapies due to on-target off-tumor toxicities which can lead to devastating consequences including death16. We previously performed integrated transcriptomic and cell surface proteomic profiling of human prostate adenocarcinoma cell lines and identified six transmembrane epithelial antigens of the prostate 1 (STEAP1) as one of the most highly enriched cell surface antigens17. STEAP1 was first described over two decades ago18 and was recognized as being highly expressed in prostate cancer. STEAP1 is strongly expressed in >80% daripada mCRPC dengan penglibatan tulang atau nodus limfa19, 62% daripada sarkoma Ewing20, dan pelbagai jenis kanser lain21. STEAP1 tergolong dalam keluarga STEAP Metallo reductases yang boleh membentuk homotrimer atau heterotrimer dengan protein STEAP lain22. STEAP1 mempunyai peranan fungsi yang mantap dalam menggalakkan percambahan sel kanser, pencerobohan, dan peralihan epitelium-ke-mesenchymal–26.
Kebaikan cistanche tubulosa-Antitumor
Tambahan pula, STEAP1 menunjukkan ekspresi terhad dalam tisu biasa27 yang menjadikannya sasaran yang sangat menarik untuk terapi kanser. Pelbagai agen imunoterapi telah dibangunkan untuk menyasarkan STEAP1 namun tiada satu pun yang diluluskan secara klinikal. ADC vandor tuzumab ved otin (DSTP3086S) yang terdiri daripada antibodi anti-STEAP1 IgG1 manusia yang dikaitkan dengan monometil auristatin E didapati mempunyai profil keselamatan yang boleh diterima dalam percubaan klinikal fasa I dalam mCRPC tetapi beberapa tindak balas tumor objektif diperhatikan28. T-BsAb yang menggabungkan dua domain pengikat serpihan-antigen (Fab) anti-STEAP1, serpihan pembolehubah rantai tunggal anti-CD3 (scFv) dan domain boleh kristal serpihan (Fc) yang direka bentuk untuk kekurangan fungsi effector yang dipanggil AMG 509 sedang dinilai dalam percubaan klinikal fasa I (NCT04221542) dalam mCRPC29. T-BsAb dwivalen asimetri yang dipanggil BC261 juga baru-baru ini dilaporkan menunjukkan aktiviti antitumor yang kuat merentasi pelbagai model praklinikal kanser prostat dan sarcoma Ewing30. Di samping itu, reseptor sel T (TCR) terhad kelas I antigen leukosit manusia (HLA) khusus untuk peptida STEAP1 telah ditunjukkan untuk menghalang pertumbuhan sarkoma Ewing tempatan dan metastatik dalam model xenograf praklinikal selepas pemindahan pakai sel T transgenik31. Dalam kajian ini, kami melakukan analisis perbandingan ekspresi relatif STEAP1 dan PSMA dalam mCRPC maut untuk menyiasat utiliti penyasaran STEAP1 dalam era semasa PSMA theranostics. Kami merekayasa dan menapis CAR STEAP1 generasi kedua untuk pengaktifan sel T khusus antigen dan sitolisis sel sasaran untuk menghasilkan calon utama untuk pencirian selanjutnya. Kami menentukan kekhususan epitope berfungsi sel T STEAP1 CAR dan memprofilkan pengembangan dan imunofenotip produk sel T STEAP1 CAR daripada berbilang penderma. Kami kemudiannya mewujudkan potensi dan keselamatan awal terapi sel T CAR STEAP1 dalam model praklinikal kanser prostat yang berkaitan tetapi memerhatikan kehilangan berulang ekspresi antigen STEAP1 sebagai mekanisme rintangan rawatan. Untuk mengatasi isu ini, kami menilai pentadbiran serentak CBD-IL-12 yang mengubahsuai persekitaran mikro tumor imunosupresif kanser prostat dan melibatkan imuniti endogen untuk meluaskan tindak balas antitumor. Secara kolektif, kajian ini memberikan rasional yang kukuh untuk terjemahan klinikal terapi sel T STEAP1 CAR kepada lelaki dengan mCRPC dan panduan strategi untuk mengatasi potensi mekanisme rintangan terapeutik.

Kebaikan cistanche tubulosa-Antitumor
Keputusan
STEAP1 secara meluas dinyatakan dalam tisu mCRPC refraktori rawatan
We first set out to determine the pattern and extent of STEAP1 expression relative to PSMA in advanced metastatic prostate cancer. We performed immunohistochemical (IHC) staining on a duplicate set of tissue microarrays consisting of 121 metastatic tumors (each with up to three cores represented) collected from 44 men with lethal mCRPC patients collected by rapid autopsy between the years 2010 and 2017 through the University of Washington Tumor Acquisition Necropsy Program32 (Fig. 1a). Plasma membrane staining for STEAP1 and PSMA in each tissue was scored by a research pathologist and semiquantitative H-scores were determined based on the staining intensity (Supple mentary Fig. 1a) multiplied by the percentage of cancer cells staining at each intensity (Supplementary Fig. 1b). By implementing a minimal staining threshold with an H-score cut-off of 30, we found that 87.7% of evaluable matched mCRPC tissues (100 of 114) demonstrated staining for STEAP1 compared to only 60.5% (69 of 114) for PSMA (Fig. 1b). In addition, 28.1% of mCRPC tissues (32 of 114) showed STEAP1 but not PSMA staining (Fig. 1b, c) whereas only 0.9% (one of 114) exhibited PSMA but not STEAP1 staining. Based on these results, we used a linear mixed statistical model to determine that the odds of non-zero (H-score >{{0}}) pewarnaan adalah 22-kali ganda (95% CI 6-173) lebih tinggi untuk STEAP1 berbanding PSMA dan kemungkinan skor H Lebih Besar daripada atau sama dengan 3{{ 27}} ialah 84-kali ganda (95% CI 30-317) lebih tinggi untuk STEAP1 berbanding PSMA. Purata skor STEAP1 H dalam tulang (193; 95% CI 171 hingga 215) adalah jauh lebih tinggi daripada metastasis nodus limfa (perbezaan -48; 95% CI -21 hingga -76; p < 0.001) dan jauh lebih tinggi daripada metastasis visceral (perbezaan -59; 95% CI -42 hingga -77; p <0.001). Tidak terdapat perbezaan yang ketara antara skor min STEAP1 H dalam metastasis nodus limfa berbanding metastasis visceral (perbezaan 11; 95% CI -16 hingga 39; p=0.4) (Tambahan Rajah 1c). Kami juga memerhatikan beberapa kes dengan ekspresi heterogen PSMA dalam teras (Rajah 1d) yang konsisten dengan laporan terbaru tentang heterogeniti PSMA intratumoral dalam biopsi mCRPC14. Analisis peringkat pesakit menggunakan min ambang skor H lebih besar daripada atau sama dengan 30 dan ujian McNemar mendedahkan bahawa 95% pesakit yang boleh dinilai (42 daripada 44) mempunyai tumor dengan ekspresi STEAP1 manakala 68% (30 daripada 44) positif untuk PSMA (Tambahan Rajah 1d). Untuk mengkaji corak heterogeniti antara pesakit dan intra-pesakit yang dikaitkan dengan ekspresi STEAP1 dan PSMA, kami menggunakan skor STEAP1 dan PSMA H untuk menilai skor kepelbagaian hipergeometrik, Simpson dan Shannon. Kami memerhatikan dua corak ekspresi STEAP1 (Rajah 1e) dengan 68% (30/44) pesakit menunjukkan ekspresi STEAP1 merentas semua tapak metastatik (STEAP1 tinggi) dan 32% (14/44) pesakit menunjukkan tapak metastatik dengan dan tanpa ekspresi STEAP1 (STEAP1 heterogen). Tiada pesakit yang dikenal pasti di mana semua tisu metastatik tidak mempunyai ekspresi STEAP1. Analisis serupa untuk ekspresi PSMA dalam kohort yang sama mendedahkan 45% (20/44) pesakit dengan ekspresi PSMA tinggi, 32% (14/44) dengan ekspresi PSMA heterogen, dan 23% (10/44) tanpa ekspresi PSMA. Berdasarkan subklasifikasi molekul tisu mCRPC menggunakan AR dan ekspresi penanda neuroendokrin synaptophysin (SYP) yang dinilai oleh IHC, kebanyakan pesakit dengan ekspresi STEAP1 dan PSMA yang tinggi atau heterogen mempunyai kanser prostat AR-positif (AR+/SYP- atau AR+/SYP+) manakala mereka tanpa ekspresi PSMA mempunyai kanser prostat AR-null (AR-/SYP+ atau AR-/SYP-). Kami mengenal pasti korelasi positif antara ungkapan STEAP1 dan AR (p <0.001) oleh model campuran linear yang dipasang dengan kesan rawak dalam kes yang diwakili pada microarray tisu (Tambahan Rajah 2a, b) yang dijangkakan memandangkan STEAP1 adalah androgen -gen terkawal33,34. Sebaliknya, trend negatif telah dihargai antara ungkapan STEAP1 dan SYP (Tambahan Rajah 2c). Penemuan ini mencadangkan bahawa, seperti PSMA35, ekspresi STEAP1 mungkin hilang dengan transdifferentiation neuroendokrin kanser prostat.

Fig. 1 | Comparative analysis of STEAP1 and PSMA in lethal, metastatic castration-resistant prostate cancer (mCRPC). a Characteristics of the mCRPC tissues represented on University of Washington Tissue Acquisition Necropsy Tissue Microarray 92 (UW TAN TMA92). b Contingency table showing the frequency of mCRPC tissues with STEAP1 or PSMA IHC staining above or below an H-score threshold of 30. Micrographs of select mCRPC tissues after STEAP1 and PSMA IHC staining to highlight the (c) absence of PSMA but the presence of STEAP1 expression and (d) intratumoral heterogeneity of PSMA expression but not STEAP1. Scale bars = 50 µm. For panels (c, d) n = 332 mCRPC cores were immunostained for STEAP1 and PSMA. e Dot and box plot showing the distribution of STEAP1 (top) and PSMA (bottom) H-scores in 44 patients from the UW TAN TMA92 cohort. Each dot represents a tumor specimen/core (n = 319 cores for PSMA and 333 cores for STEAP1) and the color indicates the molecular subtype: AR+/SYP+ (red), AR+/SYP− (green), AR−/SYP+ (yellow) and AR−/SYP− (purple). Gray rectangles show interquartile ranges spanning the 25th to the 75th percentiles of PSMA H-scores from each patient. Bar plots (on the right) summarize the frequencies of patients classified based on STEAP1 and PSMA expression as no expression (all cores with H-score ≤30, light grey), heterogeneous expression (at least one core with H-score ≤30 and H-score >30, mid grey) and high expression (all cores with H-scores >30, kelabu gelap). Data sumber disediakan dalam fail Data Sumber.
Development KERETA STEAP1 khusus antigen yang kuat
Memandangkan ekspresi meluas STEAP1 dalam mCRPC peringkat akhir dan peranan fungsinya yang dilaporkan dalam perkembangan kanser27,36,37, kami seterusnya mula merekayasa CAR generasi kedua STEAP{5}}lentiviral. Kami menggunakan pCCL-c-MNDU3-X lentiviral backbone38 yang telah digunakan secara meluas untuk terapi gen sel stem hematopoietik39 dan ekspresi CAR dalam sel T yang dipacu oleh promoter MNDU3 dalaman telah terbukti lebih tinggi daripada yang dicapai dengan Penganjur EFS40. Domain kostimulasi 4-1BB diutamakan kerana kaitannya dengan pembentukan memori sel T dan kegigihan yang berpanjangan41 dan domain transmembran CD28 telah diperkenalkan kerana ini telah ditunjukkan dapat mengurangkan ambang antigen untuk generasi kedua 4-1BB Pengaktifan sel T CAR42. Kami menggabungkan scFv yang dimanusiakan sepenuhnya yang diperoleh daripada vandor tuzumab vedotin, ADC yang menyasarkan STEAP1 yang pembangunannya telah dihentikan selepas percubaan klinikal fasa I28. ScFv ini ialah varian manusiawi antibodi monoklonal murine (mAb 120.545) yang pada asalnya dibangunkan oleh Agensys, Inc. yang menunjukkan pertalian 1 nM dalam ujian pengikatan berasaskan sel43. Untuk menala aktiviti CAR yang berpotensi, kami melaksanakan tiga panjang engsel/spacer yang berbeza termasuk pendek (Engsel IgG4), sederhana (Engsel IgG4-CH3) dan panjang (Engsel IgG4-CH2- CH3). Spacer panjang telah direka bentuk dengan 4/2- mutasi NQ44 yang diterangkan sebelum ini dalam domain CH2 untuk menghalang pengikatan reseptor Fc-gamma dan kematian sel akibat pengaktifan yang berlaku dengan pemindahan pakai sel T CAR spacer panjang ke dalam tikus kurang daya imun. Tiga calon CAR telah diklonkan ke dalam vektor lentiviral (Rajah 2a) yang turut menyatakan bersama reseptor faktor pertumbuhan epidermis terpotong (EGFRt) sebagai penanda transduksi. Lentivirus dihasilkan dan digunakan untuk memindahkan sel CD4 dan CD8 T manusia yang diperkaya daripada sel mononuklear darah periferal manusia (PBMC) yang dikumpulkan daripada pheresis. Sel T CD4 dan CD8 CAR yang diperluas telah diimunofenotaip (Tambahan Rajah 3a) dan disusun semula ke dalam produk sel komposisi yang ditentukan dengan nisbah CD4/CD8 biasa untuk menilai aktiviti fungsinya. Untuk mengawal ekspresi STEAP1 dengan cara isogenik, kami menumpukan pada barisan sel kanser prostat manusia 22Rv1 yang menunjukkan ekspresi STEAP1 asli dan melakukan kalah mati STEAP1 (ko) oleh pengeditan genom CRISPR/Cas9. Kami kemudiannya menghasilkan talian penyelamat STEAP1 daripada 22Rv1 STEAP1 ko melalui transduksi dengan lentivirus pengekspres STEAP1 (Rajah 2b). Garisan ini kemudiannya digunakan untuk menyaring tiga sel T STEAP1 CAR spacer pendek, sederhana dan panjang dalam ujian kultur bersama dengan bacaan pelepasan interferon-gamma (IFN-) sebagai penunjuk pengaktifan sel T. Hanya sel T STEAP1 CAR T pengatur jarak panjang (selepas ini dipanggil sel STEAP1-BBζ CAR T sel) menunjukkan corak pelepasan IFN- khusus antigen yang dijangkakan, manakala sel T STEAP1 CAR T pengatur jarak pendek dan sederhana tidak (Gamb. 2c , Tambahan Rajah 3b, c). Selanjutnya, sel STEAP1-BBζ CAR T menunjukkan sitolisis bergantung kepada dos yang besar bagi sel 22Rv1 berbanding sel T yang tidak ditransduksi (Rajah 2d) dan menunjukkan penjimatan relatif sel ko 22Rv1 STEAP1 (Gamb. 2e). Kajian serupa kemudiannya dilakukan dalam barisan sel kanser prostat manusia DU145 yang tidak mempunyai ekspresi STEAP1 asli tetapi direka bentuk untuk menyatakan STEAP1 (DU145 STEAP1) melalui transduksi lentiviral (Tambahan Rajah 4a). Dalam tetapan ini, pengaktifan sel STEAP1-BBζ CAR T hanya diperhatikan dalam kultur bersama dengan sel DU145 STEAP1 dan bukan sel DU145 ibu bapa (Tambahan Rajah 4b). Aktiviti sitolitik hanya dihargai dengan sel T STEAP1-BBζ CAR dan bukan sel T yang tidak ditransduksi dalam kultur bersama dengan sel DU145 STEAP1 (Tambahan Rajah 4c). Kami kemudiannya menganalisis panel sel kanser prostat manusia yang lebih besar untuk mencirikan ekspresi STEAP1 asli mereka dengan analisis imunoblot. Garis sel dengan ekspresi/aktiviti AR yang diketahui (LNCaP, 22Rv1, VCaP, dan LNCaP95) menunjukkan tahap ekspresi STEAP1 yang berbeza-beza manakala garisan sel AR-null (PC3, DU145, MSKCC EF1 dan NCI-H660) tidak kelihatan untuk menyatakan tahap STEAP1 yang boleh dikesan (Rajah 2f). Kami terus melakukan kultur bersama STEAP1-BBζ CAR T dengan talian ini untuk mengesahkan lagi pengaktifan khusus antigennya berdasarkan pelepasan IFN (Rajah 2g). Walau bagaimanapun, kami memerhatikan penemuan sumbang dalam garisan PC3, yang tidak menunjukkan ekspresi protein STEAP1 yang jelas (Rajah 2f), mendorong pengaktifan besar sel STEAP1-BBζ CAR T. Kesusasteraan terdahulu mencadangkan bahawa STEAP1 dinyatakan dalam barisan sel PC3 pada tahap rendah45. Sememangnya, pendedahan imunoblot yang berpanjangan mendedahkan jalur yang mencadangkan kehadiran ekspresi STEAP1 yang sangat rendah (Rajah 2h). Untuk mengesahkan sama ada pengaktifan sel T STEAP1-BBζ CAR T disebabkan oleh ungkapan STEAP1 kecil ini dalam sel PC3, kami menghasilkan tiga subgarisan PC3 STEAP1 ko (Rajah 2h) dan sekali lagi melakukan kultur bersama dengan STEAP{{133} }sel T BBζ CAR. STEAP1 ko dalam baris PC3 membawa kepada pemansuhan STEAP1-Pengaktifan sel T BBζ CAR (Rajah 2i), seterusnya mengesahkan kekhususan dan memberikan bukti sensitiviti sel T STEAP1-BBζ CAR T kepada rendah keadaan ketumpatan antigen.
Kekurangan kereaktifan silang STEAP1-BBζ CAR dengan tetikus Steap1 dan STEAP1B manusia

faedah tambahan cistanche-meningkatkan imuniti
Selaras dengan kekhususan anti-manusia vandor tuzumab vedotin, sel STEAP1-BBζ CAR T tidak menunjukkan kereaktifan silang dengan Steap1 tetikus (Tambahan Rajah 4a, d, e). Walau bagaimanapun, kami menggunakan ini sebagai peluang untuk menyusun semula tiga domain ekstraselular (ECD) STEAP1 manusia secara individu pada Steap1 tetikus (Tambahan Rajah 4f) untuk menentukan ECD mana yang penting untuk pengecaman epitope oleh sel STEAP1-BBζ CAR T. Percubaan kultur bersama telah dilakukan dengan sel T STEAP1-BBζ CAR dan sel DU145 yang direka bentuk untuk mengekspresikan Steap1 tetikus dengan penggantian individu ECD tetikus dengan ECD manusia. Kami mendapati bahawa STEAP1 ECD2 manusia tetapi bukan ECD1 atau ECD3 dikaitkan dengan pengaktifan sel T STEAP{17}}BBζ CAR T (Tambahan Rajah 4g). Menariknya, manusia STEAP1 dan tetikus Steap1 ECD2 menunjukkan 93.9% (31/33 asid amino) homologi (Tambahan Rajah 4h), menunjukkan bahawa Q198 dan/atau I209 manusia STEAP1 adalah penting untuk pengiktirafan produktif oleh STEAP1-BBζ sel T CAR. Q198 telah ditunjukkan berinteraksi dengan Fab sebanyak 120.545 sebagai sebahagian daripada hotspot interaksi berdasarkan struktur terkini yang diselesaikan oleh mikroskop elektron kriogenik22. Daripada keluarga protein STEAP manusia, STEAP1B mempunyai homologi terbesar untuk STEAP145. Tiga transkrip STEAP1B telah dikenal pasti, yang kesemuanya menunjukkan pemuliharaan lengkap jujukan asid amino manusia STEAP1 ECD2 (Tambahan Rajah 5a). Algoritma ramalan topologi membran konsensus TOPCONS46 meramalkan jujukan domain ECD2 sebagai ekstraselular dalam tiga isoform protein STEAP1B (Tambahan Rajah 5b) walaupun dengan skor kebolehpercayaan rendah untuk STEAP1B berbanding hSTEAP1 kerana kekurangan konsensus antara lima model ramalan topologi (OCTOPUS, Philius, PolyPhobius, SCAMPI, dan SPOCTOPUS) yang digunakan oleh TOPCONS (Tambahan Rajah 5c). Analisis sebelumnya menggunakan alat ramalan topologi berasaskan model Markov tersembunyi dalam silico TMHMM47 juga telah mencadangkan bahawa jujukan ini boleh menjadi intrasel dan bukannya ekstrasel dalam isoform protein STEAP1B 1 dan 245. Walau bagaimanapun, struktur kristal STEAP1B masih belum ditentukan untuk membuktikan secara langsung. ramalan ini. Untuk menilai secara fungsional sama ada sel T STEAP1- BBζ CAR T mungkin juga reaktif terhadap STEAP1B, kami melakukan kultur bersama menggunakan garisan DU145 yang direka bentuk untuk menyatakan setiap tiga isoform STEAP1B. Kami tidak mengenal pasti bukti pengaktifan sel T STEAP1-BBζ CAR T (Tambahan Rajah 5d), menunjukkan bahawa epitop STEAP1 yang diiktiraf oleh sel T STEAP1-BBζ CAR T mungkin tidak dipersembahkan sebagai sebahagian daripada ektodomain oleh STEAP1B walaupun homologi jujukan yang jelas.
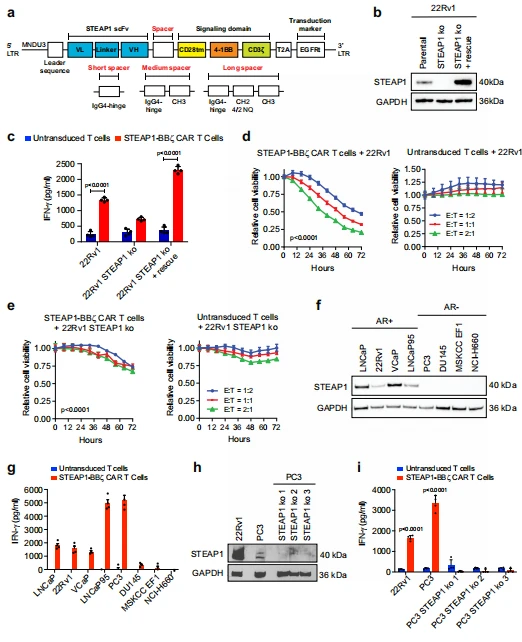
Rajah 2|Menyaring 4-1reseptor antigen chimeric BB (CAR) generasi kedua untuk mengenal pasti petunjuk bagi terapi sel T CAR STEAP1. a Skema binaan dan variasi CAR STEAP1 lentiviral berdasarkan pengatur jarak pendek, sederhana dan panjang. Ulangan terminal panjang LTR, rantau U3 virus leukemia murine Moloney MNDU3, serpihan pembolehubah rantai tunggal scFv, rantai ringan berubah VL, rantai berat berubah VH, transmembran tm, reseptor faktor pertumbuhan epidermis terpotong EGFRt, 4/2 NQ {{1{{28 }}}} Mutasi domain CH2 untuk mengelakkan pengikatan kepada reseptor Fc-gamma. b Imunoblot STEAP1 dalam sel ibu bapa 22Rv1, sel kalah mati (ko) STEAP1 dan sel STEAP1 ko dengan penyelamatan STEAP1. c IFN- Enzim-linked immunosorbent assay (ELISA) terhasil daripada kultur bersama sama ada sel T yang tidak ditransduksi atau sel T STEAP1-BBζ CAR T dengan setiap subgaris 22Rv1 pada nisbah 1:1 pada 24 jam (p < 0.001). Daya maju sel relatif bagi (d) 22Rv1 dan (e) 22Rv1 STEAP1 ko sel sasaran dari semasa ke semasa diukur dengan pengimejan sel hidup pendarfluor semasa kultur bersama dengan (kiri) sel STEAP1-BBζ CAR T sel (p < 0.001) atau ( kanan) sel T yang tidak ditransduksi pada nisbah sel effector-to-target (E: T) berubah-ubah. f Imunoblot menunjukkan ekspresi STEAP1 dalam saluran sel kanser prostat manusia reseptor androgen (AR) positif tetapi bukan saluran sel kanser prostat AR-negatif. g IFN- kuantifikasi oleh ELISA daripada kultur bersama sama ada sel T yang tidak ditransduksi atau STEAP1- sel T BBζ CAR dengan setiap barisan sel kanser prostat manusia dalam (f) pada nisbah 1:1 pada 24 jam. h Imunoblot untuk STEAP1 dalam subgarisan 22Rv1, PC3 dan PC3 STEAP1 ko. I IFN- kuantifikasi oleh ELISA daripada kultur bersama sama ada sel T yang tidak ditransduksi atau sel T STEAP1- BBζ CAR T dengan setiap baris sel dalam (h) pada nisbah 1:1 pada 24 jam (p < 0.001). Untuk panel (c–e, g, dan i) n=4 replika biologi setiap keadaan telah digunakan dan bar ralat mewakili min dengan SEM. Panel (b, f, h) memaparkan hasil mewakili n=3 replika biologi. GAPDH digunakan sebagai kawalan pemuatan protein. Untuk panel (c) dan (i), ANOVA dua hala dengan ujian perbandingan berbilang Sidak telah digunakan. Untuk panel (d) dan (e), ANOVA dua hala dengan ujian perbandingan berbilang Tukey telah digunakan. Data sumber disediakan dalam fail Data Sumber.
Pencirian produk sel STEAP1-BBζ CAR T merentas siri penderma
Kami seterusnya memprofilkan pengembangan, kecekapan transduksi dan imunofenotip produk sel T STEAP1-BBζ CAR T menggunakan tiga set bebas sel mononuklear darah periferal (PBMC) yang dikumpulkan daripada penderma yang sihat. Kami secara amnya memerhatikan pengembangan 20- hingga 40-lipat ganda bagi sel STEAP1-BBζ CAR T dalam masa 11 hari kultur (Tambahan Rajah 6a). Peratusan sel T EGFRt+ CD8 adalah antara 24.3 hingga 54.2% manakala peratusan sel T EGFRt+ CD4 T adalah lebih tinggi dan berjulat dari 60.1 hingga 74.9% dalam produk sel STEAP1-BBζ CAR T kami (Tambahan Rajah 6b). Kami memeriksa ungkapan penanda keletihan sel T PD-1 dan LAG-3 dalam subset sel T BBζ CAR T yang tidak ditransduksi dan STEAP dan mendapati tiada peningkatan ketara dalam ungkapan (Tambahan Rajah 6c ). Dapatan ini mencadangkan isyarat tonik rendah atau tiada oleh STEAP1-BBζ CAR yang menggalakkan kerana isyarat CAR konstitutif boleh memberi kesan negatif kepada fungsi efektor sel T CAR48. Kedua-dua fenotip sel T memori sel stem (Tscm) dan sel T memori pusat (TCM) telah dikaitkan dengan keberkesanan terapeutik terapi sel T CAR kerana ia menggalakkan percambahan dan kegigihan yang berterusan dalam vivo49-51. Immunofenotip bagi subset sel T yang tidak ditransduksi dan STEAP1-BBζ CAR T menunjukkan frekuensi sel Tscm yang lebih tinggi berbanding dengan subset sel T dalam PBMC penderma dari mana produk sel diperolehi (Tambahan Rajah 6d). Kesan ini berkemungkinan disebabkan oleh penambahan IL-7 dan/atau IL-15 pada media pengembangan sel T kerana sitokin ini telah ditunjukkan untuk memelihara dan meningkatkan pembezaan Tscm51,52. Analisis kami juga mendedahkan pengayaan dalam populasi Tcm terutamanya dalam sel CD8 STEAP1-BBζ CAR T (Tambahan Rajah 6e).
STEAP1-Sel T BBζ CAR menunjukkan kesan antitumor yang besar dalam model kanser prostat yang disebarkan dengan ekspresi STEAP1 asli yang ditubuhkan pada tikus kekurangan imun

cistanche tubulosa-meningkatkan sistem imun
Sebagai skrin awal untuk aktiviti antitumor in vivo, kami menubuhkan tumor xenograf subkutaneus 22Rv1 dalam tikus NOD scid gamma (NSG) lelaki. Apabila tumor membesar kepada kira-kira 100 mm3, tikus dirawat dengan suntikan intratumoral tunggal sama ada 5 × 10⁶ sel T tidak transduksi atau sel T STEAP1-BBζ CAR T. Rawatan intratumoral dengan sel T STEAP1- BBζ CAR T dikaitkan dengan perencatan pertumbuhan tumor yang ketara yang signifikan secara statistik pada hari ke-18 rawatan (Rajah 3a). Tikus telah dikorbankan pada hari ke 25 dan sisa tumor daripada tikus yang dirawat dengan STEAP1-BBζ CAR T sel menunjukkan kawasan besar serpihan nekrotik dan kawasan tumor yang berdaya maju telah disusupi dengan CD3+ STEAP1-BBζ Sel T CAR (Tambahan Rajah 7a). Ekspresi STEAP1 telah dipelihara dalam tumor merentas kumpulan rawatan (Tambahan Rajah 7b). Kami memindahkan sel 22Rv1 dengan lentivirus untuk menguatkuasakan ekspresi firefly luciferase (Luc) dan sel 106 22Rv1-fLuc telah disuntik ke dalam urat ekor tikus NSG jantan. Penjajahan metastatik telah divisualisasikan oleh pengimejan bioluminesensi hidup (BLI) selepas dua minggu, di mana tikus dirawat dengan suntikan intravena tunggal sama ada 5 × 10⁶ sel T yang tidak ditransduksi atau sel STEAP1-BBζ CAR T (Rajah 3b) . BLI bersiri mendedahkan perkembangan penyakit pesat pada tikus yang dirawat dengan sel T yang tidak ditransduksi manakala mereka yang menerima sel T STEAP1-BBζ CAR T menunjukkan kelewatan yang ketara dalam perkembangan tumor (Rajah 3c, d) dan lanjutan kemandirian (97 hari berbanding 31 hari , p=0.0018 melalui ujian peringkat log, Rajah 3e). Tiada perbezaan ketara dalam berat tetikus antara lengan rawatan (Tambahan Rajah 7c). Pewarnaan IHC tumor pada akhir kajian menunjukkan pengurangan ketara dalam ekspresi STEAP1 (Tambahan Rajah 7d), menunjukkan bahawa melarikan diri antigen adalah mekanisme rintangan. Walau bagaimanapun, ini tidak mungkin hasil daripada transdifferentiation kepada keadaan kanser prostat varian kerana kami tidak menghargai perubahan morfologi, kehilangan ekspresi AR dan PSMA53, atau keuntungan ekspresi SYP (Tambahan Rajah 7d). Untuk menyiasat kesan global kehilangan STEAP1 dalam kanser prostat, kami melakukan pemprofilan transkriptom jenis liar 22Rv1 isogenik (berat), 22Rv1 STEAP1 ko, dan 22Rv1 STEAP1 ko + talian sel penyelamat yang telah kami sediakan sebelum ini (Rajah 2b). Analisis ekspresi gen pembezaan membandingkan sel 22Rv1 STEAP1 ko dengan sel 22Rv1 berat yang dikenal pasti ~1700 gen dikurangkan dengan ketara (FDR Kurang daripada atau sama dengan 0.05, perubahan lipatan<2) with STEAP1 knockout. Rescue of STEAP1 expression in the 22Rv1 STEAP1 ko cells revealed that ~600 genes were significantly upregulated (FDR ≤ 0.05, fold-change>2) dengan tambahan STEAP1 (Tambahan Rajah 8a). Analisis Pengayaan Set Gen (GSEA) mencalonkan beberapa laluan biologi yang mungkin diselaraskan oleh modulasi ekspresi STEAP1. Yang menonjol di antaranya ialah perkembangan kitaran sel dan pelbagai proses metabolik termasuk kitaran Kreb dan glikolisis yang diperkaya secara negatif oleh kalah mati STEAP1 dan diselamatkan selepas penambahan STEAP1 (Tambahan Rajah 8b). Kami menggunakan 31-tandatangan kemajuan kitaran sel gen (CCP) yang disahkan54 pada data kami yang menunjukkan penurunan peraturan tandatangan CCP yang ketara yang dikaitkan dengan kalah mati STEAP1 dengan skor −0.8 yang meningkat dengan ketara kepada {{ 14}}.5 dengan menyelamatkan ungkapan STEAP1 (Tambahan Rajah 8c). Data ini konsisten dengan penerbitan terdahulu yang menunjukkan bahawa penurunan STEAP1 dalam barisan sel kanser prostat LNCaP menjejaskan daya maju dan percambahan sel sambil mendorong apoptosis37. Kami juga menyatakan bahawa pemprosesan dan pembentangan antigen adalah salah satu daripada laluan KEGG yang paling ketara diperkaya dengan kalah mati STEAP1 (Tambahan Rajah 8b). Kami melihat penurunan regulasi gen yang ketara termasuk PSME1 (subunit pengaktif proteasom 1) yang merupakan ahli kompleks imunoproteasom, TAP1 (pengangkut 1, ahli subfamili kaset pengikat ATP) yang penting kepada kompleks histokompatibiliti utama (MHC) kelas I peptida- kompleks pemuatan, dan beberapa gen kelas I dan II MHC seperti MR1 (kompleks histokompatibiliti utama, berkaitan kelas I), HLA-DQ-B1, dan HLA-DQB2 (Tambahan Rajah 8d). Kami selanjutnya menyiasat tumor yang dikumpul daripada model disebarkan 22Rv1 yang dirawat dengan terapi sel STEAP1- BBζ CAR T yang menunjukkan kehilangan antigen (Rajah 3c, Rajah Tambahan 7d) melalui analisis transkrip. Analisis ekspresi gen pembezaan dan GSEA seterusnya membandingkan tumor metastatik 22Rv1 daripada tikus yang dirawat dengan terapi sel T STEAP1-BBζ CAR T BBζ kepada mereka yang dirawat dengan sel T yang tidak ditransduksi menunjukkan pengayaan negatif laluan yang terlibat dalam MHC, limfosit sitotoksik dan pengaktifan sel T ( Tambahan Rajah 9a, b). Kami juga menilai secara khusus ekspresi gen kelas I dan II MHC dan memerhatikan penurunan regulasi yang ditandakan dalam tumor 22Rv1 yang dirawat dengan terapi sel T STEAP1-BBζ CAR T (Tambahan Rajah 9c). Keputusan ini dibuktikan lagi dengan pengurangan ketara dalam pewarnaan HLA-A, B, C oleh IHC dalam tumor ini (Tambahan Rajah 9d). Potensi implikasi data ini ialah rawatan dengan terapi sel T STEAP1-BBζ CAR T dan akibat kehilangan ekspresi antigen tumor STEAP1 dalam kanser prostat boleh mengakibatkan rintangan imunoterapi selanjutnya melalui pemprosesan dan pembentangan antigen yang terjejas. Kami juga menyuntik tikus NSG jantan dengan sel C4-2B-fLuc melalui suntikan urat ekor. C4-2B ialah subgarisan tahan pengebirian bagi LNCaP55 dengan kinetik pertumbuhan lebih sejajar dengan kanser prostat biasa. Empat minggu selepas suntikan, penjajahan metastatik telah disahkan oleh BLI, dan tikus dirawat dengan suntikan intravena tunggal sama ada 5 × 10⁶ sel T yang tidak ditransduksi atau sel T STEAP1-BBζ CAR T (Rajah 3b). BLI bersiri menunjukkan tindak balas yang lengkap dalam semua tikus yang menerima sel T CAR T STEAP1-BBζ dalam tempoh lima minggu rawatan (Rajah 3f, g). Kami mengenal pasti trend peningkatan penurunan berat badan dalam kumpulan rawatan sel T yang tidak ditransduksi (Tambahan Rajah 10a) tetapi ini tidak signifikan secara statistik. Nekropsi tikus yang dirawat dengan sel STEAP1-BBζ CAR T tidak menunjukkan penyakit makroskopik dan ex vivo BLI organ tidak mendedahkan sebarang isyarat (Tambahan Rajah 10b), menunjukkan bahawa tikus ini berkemungkinan sembuh. Kami mengenal pasti kegigihan persisian sel STEAP1-BBζ CAR T pada penghujung percubaan berdasarkan kehadiran CD3+ splenosit EGFRt+ yang boleh dikesan (Gamb. 3h).
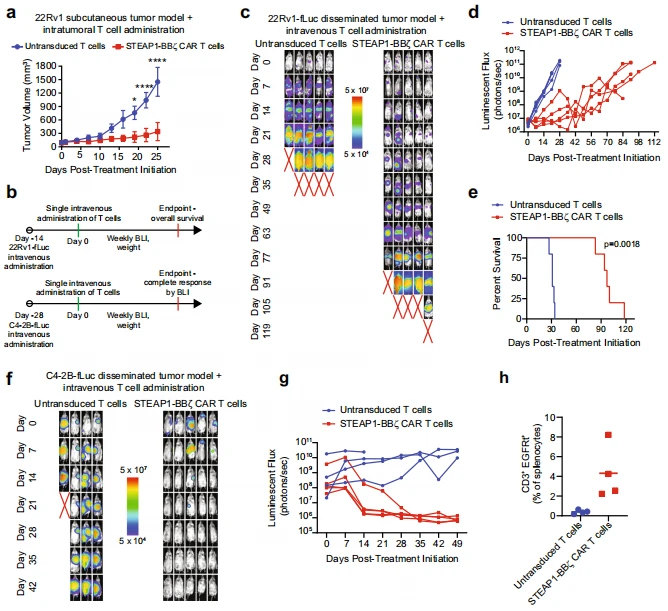
Rajah 3|Aktiviti antitumor in vivo terapi sel STEAP1-BBζ CAR T dalam model kanser prostat dengan ekspresi STEAP1 asli. a Jumlah tumor subkutaneus 22Rv1 dalam tikus NSG (n=4 untuk kumpulan sel T yang tidak ditransduksi dan n=5 untuk kumpulan sel T STEAP1-BBζ CAR T) dari semasa ke semasa selepas satu suntikan intratumoral sebanyak 5 × 10⁶ sel T yang tidak ditransduksi atau STEAP{{10}}sel T CAR BBζ pada nisbah CD4/CD8 biasa. p < 0.0001 pada hari 20 dan 25. Bar mewakili min dengan SEM. b Skema percubaan cabaran tumor untuk model penyebaran 22Rv1 (atas) dan C{19}}B (bawah). Luc firefly luciferase, pengimejan bioluminescence BLI. c Pengimejan bioluminesensi hidup bersiri (BLI) tikus NSG yang dicantumkan dengan metastasis 22Rv1-fLuc dan dirawat dengan suntikan intravena tunggal 5 × 10⁶ sel T yang tidak ditransduksi atau STEAP1-sel T BBζ CAR pada CD4 biasa/ Nisbah CD8 pada hari 0. Merah X menandakan tikus mati. Skala sinaran ditunjukkan. d Plot menunjukkan kuantifikasi jumlah fluks dari semasa ke semasa daripada BLI hidup setiap tetikus dalam (c). e Lengkung kelangsungan hidup Kaplan–Meier tikus dalam (c) dengan kepentingan statistik ditentukan oleh ujian peringkat log (Mantel-Cox). Untuk panel (c–e) n=5 tikus setiap keadaan telah digunakan. f BLI hidup bersiri tikus NSG yang dicantumkan dengan metastasis C4-2B dan dirawat dengan suntikan intravena tunggal 5 × 10⁶ sel T yang tidak ditransduksi atau sel T STEAP1-BBζ CAR T pada nisbah CD4/CD8 biasa pada hari 0. Merah X menandakan tikus mati. Skala sinaran ditunjukkan. g Plot menunjukkan kuantifikasi jumlah fluks dari semasa ke semasa daripada BLI hidup setiap tetikus dalam (f). Untuk panel (f, g) n=4 tikus digunakan dalam kumpulan sel T yang tidak ditransduksi dan n=5 tikus dalam kumpulan sel T STEAP1-BBζ CAR. h Kuantifikasi CD3+ EGFRt+ STEAP1-sel T BBζ CAR melalui sitometri aliran daripada splenosit tikus yang dirawat dengan sel STEAP1-BBζ CAR T (n=4) pada penghujungnya daripada eksperimen pada hari ke 49. Bar mewakili min. Untuk panel (a), ANOVA dua hala dengan ujian perbandingan berbilang Sidak telah digunakan. Data sumber disediakan dalam fail Data Sumber.
Kajian sel T STEAP1 CAR tikus dalam tetikus menunjukkan keberkesanan terapeutik antitumor
Pengaktifan dan aktiviti sitolitik sel T STEAP1-BBζ CAR T diperhatikan dalam konteks ketumpatan antigen STEAP1 (~1500 molekul/sel) yang sangat rendah bagi garisan sel PC3 (Rajah 2g–i, Rajah Tambahan 11a, b ) dan bukti aktiviti antitumor in vivo dalam model tumor PC3-fLuc yang disebarkan (Tambahan Rajah 11c–e) membentangkan kebimbangan tentang potensi ketoksikan luar tumor atas sasaran. Untuk menilai potensi ketoksikan dalam organisma model yang boleh dikesan, kami menghasilkan tetikus STEAP1 knock-in (hSTEAP1-KI) manusia yang mana gen STEAP1 manusia telah diketuk ke dalam lokus gen Steap1 tetikus pada latar belakang C57Bl/6 ( Rajah 4a). Koloni tikus telah ditubuhkan dengan genotaip yang dilakukan oleh tindak balas rantai polimerase (PCR) DNA ekor (Rajah 4b). Kedua-dua tikus hSTEAP1-KI homozigot dan heterozigot tidak mempamerkan keabnormalan fenotip atau pembiakan yang ketara berbanding dengan rakan sepah jenis liar. Tinjauan tisu untuk ekspresi STEAP1 manusia berdasarkan PCR transkripsi terbalik kuantitatif (qRT-PCR) telah dilakukan pada tikus hSTEAP 1-KI (hSTEAP1-KI/ + ) heterozigot lelaki dan perempuan dan mendedahkan ungkapan relatif terbesar dalam prostat, diikuti oleh rahim dan kelenjar adrenal (Rajah 4c). Analisis in situ selanjutnya oleh STEAP1 IHC bagi hSTEAP lelaki1-KI/ + prostat dan kelenjar adrenal mendedahkan ekspresi STEAP1 manusia terhad kepada sel epitelium luminal prostat (Rajah 4d) dan ekspresi dalam korteks adrenal (Rajah 4e) . Versi murinized CAR STEAP1, yang dipanggil STEAP1-mBBζ CAR, yang mana scFv dan IgG4 hinge-CH2-CH3 spacer dikekalkan tetapi domain transmembran CD28, 4-1domain costimulatory BB , dan domain pengaktifan CD3ζ telah digantikan dengan ortolog tetikus mereka telah diklonkan ke dalam binaan gammaretroviral (Rajah 4f). Di samping itu, penanda transduksi EGFRt manusia telah digantikan dengan CD19 tetikus terpotong (mCD19t) untuk meminimumkan potensi imunogenik. Kami mengesahkan transduksi retroviral yang cekap bagi sel T yang diperkaya daripada splenosit tetikus (Rajah 4g) dan menunjukkan kapasiti STEAP1-mBBζ sel T CAR tetikus untuk mendorong sitolisis barisan sel kanser prostat tetikus RM956 yang direka bentuk untuk mengekspresikan STEAP1 manusia. (RM9- hSTEAP1) melalui transduksi lentiviral (Gamb. 4h). Keberkesanan in vivo sel STEAP1-mBBζ CAR T tetikus telah disahkan dalam model tumor fLuc RM{9-STEAP1-fLuc yang disebarkan dalam tikus NSG (Tambahan Rajah 12a). Seminggu selepas suntikan vena ekor RM9-STEAP1-sel fLuc, tikus dirawat dengan sama ada 5 × 10⁶ sel T tetikus tidak transduksi atau sel STEAP tetikus1-mBBζ CAR T melalui suntikan urat ekor . Tikus yang menerima sel T tetikus yang tidak ditransduksi menunjukkan perkembangan penyakit yang tidak terkawal, manakala yang dirawat dengan sel T STEAP1-mBBζ CAR T secara seragam menunjukkan regresi penyakit yang cepat yang diikuti dengan kambuh berikutnya sepuluh hari kemudian (Tambahan Rajah 12b, c). Terapi sel T STEAP1-mBBζ CAR telah dikaitkan dengan faedah survival yang ketara secara statistik (22 hari berbanding 12 hari, p=0.0039 melalui ujian peringkat log, Rajah Tambahan 12d). Penurunan berat badan terbukti dalam kedua-dua kumpulan rawatan apabila beban tumor meningkat sebelum kematian (Tambahan Rajah 12e, f). Analisis splenosit tikus yang dikumpul semasa nekropsi menunjukkan kegigihan persisian sel STEAP1-mBBζ CAR T dengan pengesanan sel mCD3+ mCD19t+ sehingga 24 hari selepas pemindahan pakai (Tambahan Rajah 12g). Paru-paru dituai daripada tikus dalam kedua-dua kumpulan rawatan dan STEAP1 IHC menunjukkan kehilangan ekspresi STEAP1 dalam metastasis pulmonari daripada tikus yang dirawat dengan sel T STEAP1-mBBζ CAR T (Tambahan Rajah 12h). Kami kemudiannya mengembangkan garisan fLuc RM9-STEAP1-klon untuk menentukan sama ada pelepasan antigen tumor yang diperhatikan boleh disebabkan oleh heterogeniti sedia ada dalam ungkapan STEAP1. Percubaan diulang dengan model tumor fLuc RM9-STEAP1- yang disebarkan secara klonal dalam tikus NSG (Tambahan Rajah 13a). Dalam konteks ini, tikus yang dirawat dengan sel STEAP1-mBBζ CAR T menunjukkan tindak balas lengkap yang cepat dan tahan lama (Tambahan Rajah 13b–d). Penemuan ini menyerlahkan potensi sel T STEAP1-mBBζ CAR T dalam membasmi kanser prostat1+ STEAP dan seterusnya mencadangkan bahawa strategi terapeutik tambahan mungkin diperlukan untuk mengatasi rintangan dalam subkumpulan pesakit kanser prostat lanjutan di mana heterogen STEAP1 ungkapan hadir (Rajah 1e).

manfaat cistanche untuk lelaki-menguatkan sistem imun
Klik di sini untuk melihat produk Cistanche Enhance Immunity
【Minta lebih lanjut】 E-mel:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Terapi sel T CAR STEAP1 selamat dalam model tetikus STEAP1 yang dimanusiakan
Untuk menyiasat kedua-dua keselamatan praklinikal dan keberkesanan terapi sel STEAP1-mBBζ CAR T, kami menyuntik tikus hSTEAP1-KI heterozigot jantan dengan syngeneik, bukan klonal RM9-STEAP{{4} } sel fLuc melalui suntikan urat ekor (Rajah 5a). Selepas pengesahan kolonisasi metastatik oleh BLI kira-kira seminggu kemudian, tikus menerima pra-kondisi cyclophosphamide 100 mg/kg melalui suntikan intraperitoneal57. Sehari kemudian, tikus secara rawak untuk dirawat dengan sama ada 5 × 10⁶ sel T tetikus yang tidak ditransduksi atau sel T tetikus STEAP1-mBBζ CAR T melalui suntikan urat ekor. Semua tikus yang menerima sel T STEAP1-mBBζ CAR tetikus menunjukkan penurunan beban tumor dalam minggu pertama permulaan rawatan berdasarkan BLI (Rajah 5b, c). Tindak balas yang diperhatikan adalah jangka pendek tetapi membawa kepada lanjutan hidup yang sederhana (21 hari berbanding 12 hari, p=0.0138 melalui ujian peringkat log, Rajah 5d)—sama dengan penemuan daripada RM bukan klonal 9-STEAP1-Percubaan fLuc dalam tikus NSG (Tambahan Rajah 12d). Tiada ketoksikan kasar atau kematian pramatang yang dikaitkan secara khusus dengan terapi sel STEAP1-mBBζ CAR T tikus pada tahap dos ini di mana bukti jelas keberkesanan antitumor diperhatikan. Penurunan berat badan dikaitkan dengan peningkatan beban tumor tetapi biasa kepada kedua-dua lengan rawatan (Rajah 5e, f). Untuk menilai lebih lanjut potensi ketoksikan terapi sel T STEAP1-mBBζ CAR T, percubaan serupa dilakukan secara selari dalam tikus hSTEAP1-KI heterozigot yang mempunyai tumor hSTEAP1 RM9-hSTEAP1 dan tiada tumor. Tikus yang tidak membawa tumor yang dirawat dengan sel T yang tidak ditransduksi atau sel T STEAP1- mBBζ CAR T tidak menunjukkan sebarang perbezaan dalam kemandirian (Tambahan Rajah 14a) atau ketoksikan kasar termasuk kehilangan berat badan (Tambahan Rajah 14b). Oleh kerana STEAP1-BBζ CAR terdiri daripada pengatur jarak IgG4 yang diubah suai yang mungkin berpotensi menjadi imunogenik, kami menilai tindak balas antibodi anti-manusia (MAHA) tikus dengan mengumpul pendarahan retroorbital daripada tikus dalam eksperimen ini. Tiada antibodi IgG dan IgM anti-manusia dikesan dalam sera tikus pada hari ke-8 selepas rawatan dengan sel T STEAP1-BBζ CAR T (Tambahan Rajah 14c).
Yang penting, tikus hSTEAP1-KI heterozigot yang dirawat dengan sel T STEAP1-mBBζ CAR T tidak menunjukkan gangguan tisu yang jelas atau peningkatan penyusupan sel T CD3+ dalam prostat (Tambahan Rajah 15a, b ) atau kelenjar adrenal (Tambahan Rajah 15c, d) berbanding rakan sejawat mereka yang dirawat dengan sel T yang tidak ditransduksi, menunjukkan ketiadaan ketoksikan luar tumor pada sasaran. Paru-paru yang dikumpul pada penghujung eksperimen menunjukkan ekspresi STEAP1 manusia dalam metastasis pulmonari RM9-hSTEAP1 dengan heterogen serantau dalam tikus yang dirawat dengan sel T tikus yang tidak ditransduksi (Rajah 5g). Sebaliknya, tumor daripada tikus yang dirawat dengan sel STEAP1-mBBζ CAR T tikus sekali lagi menunjukkan ketiadaan ekspresi STEAP1 manusia (Rajah 5h). Untuk menilai sama ada terapi sel STEAP1- mBBζ CAR T tetikus dan kehilangan antigen STEAP1 manusia juga boleh memberi kesan kepada pembentangan antigen dalam tumor RM9-hSTEAP1, kami melakukan IHC untuk beta murine-2-microglobulin (B2m ) yang merupakan komponen utama molekul kelas I MHC. Kami memerhatikan penurunan regulasi ketara bagi ekspresi B2m dalam tumor progresif selepas rawatan dengan sel STEAP1-mBBζ CAR T tikus berbanding sel T yang tidak ditransduksi (Tambahan Rajah 15e, f), selaras dengan penemuan kami dalam model 22Rv1.
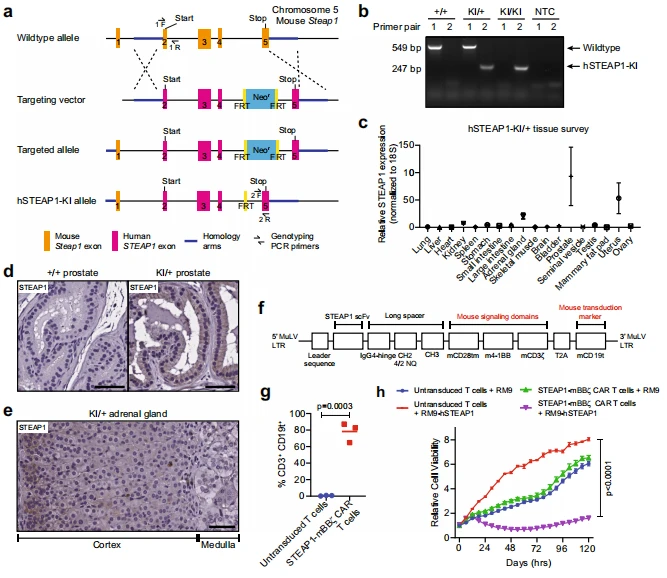
Rajah 4|Mewujudkan sistem tetikus dalam tetikus dengan model tetikus STEAP1 knock-in (hSTEAP1-KI) manusia dan CAR STEAP1 murinized. Skema yang menunjukkan strategi penggabungan semula homolog menggunakan vektor penyasaran untuk mengetuk keluar STEAP1 manusia 2–5 ke dalam lokus Steap1 tetikus pada latar belakang C57Bl/6. Sasaran pengiktirafan FRT Flippase. b Visualisasi produk PCR daripada genotaip hujung ekor tikus jenis liar (+/+), heterozigot (KI/+) atau homozigot (KI/KI) menggunakan pasangan primer bertujuan untuk menguatkan bahagian alel wildtype atau hSTEAP1-KI . Kawalan templat null NTC. Imej gel perwakilan daripada n=3 eksperimen bebas biologi. c qPCR untuk ekspresi STEAP1 manusia dinormalkan kepada ungkapan 18 S dalam tinjauan tisu daripada tikus hSTEAP1-KI/+. n=3 untuk organ khusus jantina dan n=6 untuk organ biasa. Bar mewakili min dengan SEM. Mikrograf foto pewarnaan STEAP1 IHC bagi (d) tisu prostat dari (kiri) +/+ dan (kanan) KI/+ tikus dan (e) kelenjar adrenal daripada tetikus KI/+. Bar skala=50 µm. Untuk panel (d, e) imunostaining STEAP1 telah dilakukan pada n=3 spesimen bebas biologi. f Skema binaan CAR STEAP1 murinized retroviral. Virus leukemia murine MuLV, tetikus mCD19t dipotong CD19. g Kuantifikasi kecekapan transduksi retroviral sel T tetikus diaktifkan daripada tiga eksperimen bebas berdasarkan kekerapan CD tetikus3+ sel CD19t+ oleh sitometri aliran (p {{40}}.0003). h Daya maju sel relatif RM9 atau RM9-hSTEAP1 sel sasaran dari semasa ke semasa diukur dengan pengimejan sel hidup pendarfluor pada kultur bersama pada nisbah 1:1 dengan sel STEAP1-mBBζ CAR tetikus atau sel T tidak transduksi (p < 0.0001). n=4 replika biologi setiap keadaan. Bar ralat mewakili min dengan SEM. Untuk panel (g), ujian t Pelajar dua ekor tidak berpasangan dengan pembetulan Welch telah digunakan. Dalam panel (h), ANOVA dua hala dengan ujian perbandingan berbilang Sidak telah digunakan. Data sumber disediakan dalam fail Data Sumber.
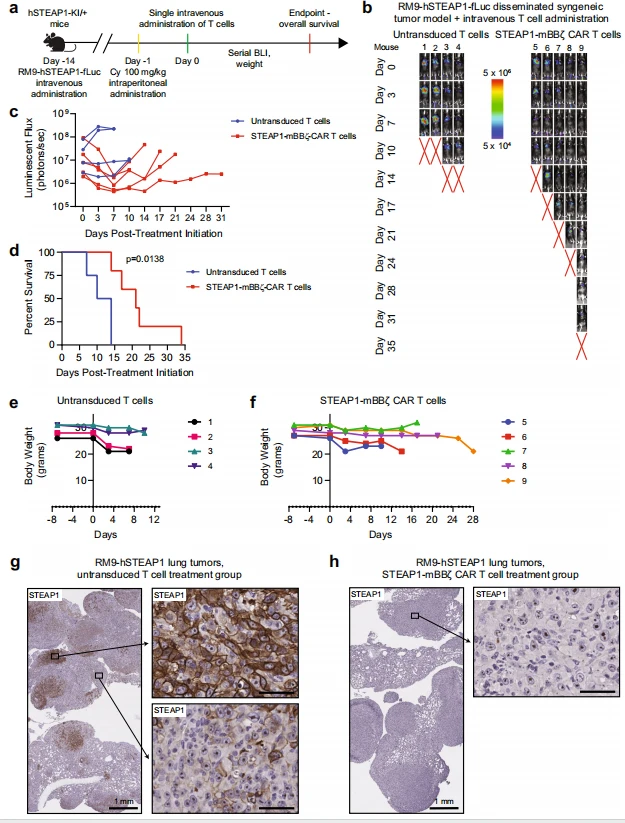
Rajah 5|Penentuan keberkesanan dan keselamatan tetikus STEAP1-mBBζ CAR T sel dalam hSTEAP1-KI tikus yang mengandungi syngeneic, kanser prostat tersebar.
Domain pengikat kolagen-IL-12 sitokin gabungan menimbulkan tindak balas antitumor melalui isyarat reseptor sel T yang dipertingkatkan dan pembentangan antigen
IL{{0}} ialah sitokin heterodimerik yang terdiri daripada subunit p40 dan p35 yang mengawal tindak balas sel T dan membawa kepada penghasilan IFN- . Tindak balas antitumor yang ketara yang dikaitkan dengan pentadbiran IL-12 sistemik telah ditunjukkan dalam beberapa model praklinikal58,59 tetapi terjemahan pendekatan terapeutik ini kepada klinik terhenti disebabkan oleh ketoksikan dan ketidakberkesanan yang mengehadkan dos60–63. Strategi alternatif untuk memintas isu ini telah disasarkan untuk menyetempatkan IL{{1{0}} kepada tumor, sama ada melalui penghantaran intratumoral atau protein gabungan IL-12 kejuruteraan untuk memanfaatkan sifat unik persekitaran mikro tumor. Satu pendekatan yang diterangkan baru-baru ini ialah gabungan kepada domain A3 faktor von Willebrand yang berfungsi sebagai domain pengikat kolagen (CBD, Rajah 6a) dan membolehkan pengikatan protein gabungan kepada kolagen terdedah dalam vasculature tumor yang tidak teratur64. Terapi CBD-IL-12 sistemik telah ditunjukkan untuk merombak persekitaran mikro tumor kanser payudara murine dan model melanoma "sejuk" secara imunologi melalui isyarat IFN- yang dipertingkatkan dan bekerjasama dengan anti-PD{{20}} perencatan pusat pemeriksaan imun untuk mendorong pembasmian tumor65. Kami bertanya sama ada CBD-IL-12 boleh berkesan dalam menukar kanser prostat daripada "sejuk" kepada "panas" dan mendorong tindak balas antitumor. Tumor subkutaneus, syngeneic RM9 dan Myc-CaP telah ditubuhkan pada tikus C57Bl/6 dan FVB jantan, masing-masing, dan tikus secara rawak untuk rawatan dengan kenderaan, anti-PD-1 atau CBD-IL-12 . Pentadbiran CBD-IL-12 sistemik mendorong perencatan pertumbuhan tumor yang ketara dalam kedua-dua model tumor syngeneic RM9 dan Myc-CaP yang sebaliknya kurang responsif terhadap terapi anti-PD-1 (Rajah 6b, Rajah Tambahan 16a) . Untuk mendapatkan maklumat lanjut tentang mekanisme tindakan CBD-IL-12, kami melakukan analisis RNA-seq (scRNA-seq) sel tunggal bagi tumor RM9 daripada tikus yang dirawat dengan sama ada kenderaan atau CBDIL-12. Plot Penghampiran Manifold dan Unjuran Seragam mendedahkan pengurangan ketara dalam petak sel epitelium, fibroblas, dan endothelial tumor (Tambahan Rajah 16b) selaras dengan aktiviti antitumor. Pemprofilan berasaskan penanda bagi subset sel imun semula jadi dan adaptif (Rajah 6c,d) dalam data scRNA-seq mengenal pasti peningkatan ketara dalam CD8+ sel T (7.55 lwn. 0.76%) , sel pembentangan silang antigen termasuk XCR1+ IRF8+ sel dendritik jenis 1 konvensional (cDC1, 1.33 lwn. 0%), CD86+ INOS2+ makrofaj terkutub M1 ( 2.26 lwn 0%) dan CD64+ F4/ 80+ monosit/makrofaj (29.2 lwn 4.43%) dalam tumor daripada kumpulan rawatan CBDIL-12 berbanding kumpulan kawalan kenderaan. Pengurangan dalam CD{78}} imunosupresif makrofaj terpolarisasi M2 (0 lwn. 0.25%) dan neutrofil Ly6G+ (0.52 lwn. 1.08%) turut dikaitkan dengan terapi CBD-IL-12. Analisis IHC mengesahkan bahawa tumor RM9 yang dirawat dengan kenderaan biasanya kekurangan sel T CD{93}} manakala yang dirawat dengan CBD-IL-12 menunjukkan penyusupan sel T CD8+ yang ketara (Tambahan Rajah 16c) . Sel tumor menunjukkan ekspresi diperkaya subunit proteasome dan immunoproteasome Psmb8 dan Psmb9 serta gen kompleks histokompatibiliti histokompatibiliti utama kelas I (MHC I) H2-K1, H2-D1 dan B2m, selaras dengan pengawalseliaan pemprosesan antigen dan jentera persembahan (Rajah 6e, Rajah Tambahan 16d). Secara selari, sel T mempamerkan ekspresi gen yang dipertingkatkan yang dikaitkan dengan isyarat reseptor sel T dan interaksi immunoregulatory antara limfoid dan sel bukan limfoid (Rajah 6f, Rajah Tambahan 16e). Sel-sel sistem fagosit mononuklear (MPS) menunjukkan ekspresi gen diperkaya yang berkaitan dengan pemprosesan antigen dan pembentangan silang serta isyarat sitokin (Tambahan Rajah 16f, g). Kajian ini mewujudkan aktiviti antitumor CBD-IL{113}} dalam model kanser prostat melalui pengaturcaraan semula persekitaran mikro tumor dan penglibatan kedua-dua sistem imun semula jadi dan adaptif.
Kawalan tumor dipertingkatkan dengan terapi STEAP1-mBBζ CAR T dan terapi CBD-IL-12 bersamaan
Kami seterusnya membuat hipotesis bahawa meluaskan tindak balas imun antitumor dengan terapi CBD-IL-12 boleh meningkatkan keberkesanan terapeutik STEAP1-mBBζ terapi sel T CAR dalam kanser prostat dengan memerangi heterogeniti antigen tumor dan penyelamatan pemprosesan antigen dan pembentangan. Oleh itu, kami telah menubuhkan syngeneic, bukan klonal RM9-STEAP1-metastasis fLuc dalam tikus heterozigot KI1-KI dan rawak untuk rawatan dengan sama ada 5 × 10⁶ sel T tetikus yang tidak ditransduksi atau sel T tetikus STEAP1-mBBζ CAR T melalui suntikan urat ekor dengan atau tanpa terapi CBD-IL-12 mingguan melalui suntikan sinus retroorbital. Kumpulan yang menerima terapi CBD-IL-12 sahaja atau digabungkan dengan terapi STEAP1-mBBζ CAR T tidak menerima cyclophosphamide yang mengurangkan limfo (Gamb. 7a). BLI bersiri mendedahkan perkembangan penyakit yang pesat pada tikus yang dirawat dengan sel T yang tidak ditransduksi dan CBD-IL-12 manakala mereka yang menerima sel T STEAP1-BBζ CAR T dalam kombinasi dengan terapi CBD-IL-12 menunjukkan kesan yang ketara. kelewatan dalam perkembangan tumor (Rajah 7b, c). Yang penting, gabungan rawatan dengan sel STEAP1- tetikus mBBζ CAR T dan CBD-IL-12 mingguan telah dikaitkan dengan lanjutan yang signifikan secara statistik dalam kemandirian keseluruhan jika dibandingkan dengan semua kumpulan rawatan lain (Gamb. 7d). Analisis sitokin plasma pada pendarahan retroorbital yang dikumpul pada hari ke-0 dan hari ke-8 rawatan menunjukkan peningkatan ketara dalam tahap sitokin proinflamasi IFN-, TNF-, IL-6 dan IL-4 (Rajah 7e, Rajah Tambahan). . 17) pada tikus yang dirawat dengan sel T STEAP1-mBBζ CAR dan CBD-IL-12. Tumor sisa dikumpul semasa nekropsi dan STEAP1 IHC menunjukkan kehilangan antigen dalam tumor daripada tikus yang dirawat dengan kedua-dua sel T STEAP1- mBBζ CAR T sahaja dan digabungkan dengan CBD-IL-12 (Rajah 8a). Di samping itu, kami melihat peningkatan dalam ekspresi B2m tumor (Rajah 8a) yang dikaitkan dengan terapi CBD-IL-12. CD3+ sel T juga telah meningkat (Rajah 8b) dalam keadaan tumor yang tertakluk kepada terapi IL-12 tetapi, sementara trend dihargai, kami tidak menemui peningkatan yang ketara secara statistik dalam sel T intratumoral antara STEAP1-mBBζ CAR T sel dan gabungan STEAP1-mBBζ CAR T cell dan CBD-IL-12 kumpulan rawatan. Tumor sisa termasuk daripada tikus yang dirawat dengan gabungan sel STEAP1-mBBζ CAR T dan CBD-IL-12 yang dikumpulkan pada tindak balas rawatan maksimum (nadir) pada hari ke-10 dan pada titik akhir belas kasihan untuk perkembangan tumor (kambuh semula) adalah dipisahkan kepada sel tunggal dan subset sel imun dicirikan oleh sitometri aliran multiparametrik (Tambahan Rajah 18). Selaras dengan keputusan scRNA-seq kami, rawatan CBD-IL-12 sama ada bersendirian atau digabungkan dengan sel T STEAP1-mBBζ CAR T membawa kepada peningkatan ketara dalam CD11b+ Ly6C-/+F4/{{68 }} Makrofaj MHC-II+ (Rajah 8c, d, Rajah Tambahan 19a). CD11b+ Ly6CF4/80+ Sel MHC-II+ mewakili makrofaj yang membentangkan antigen matang66 dan populasi ini lebih disukai diperkaya dan menunjukkan peningkatan ekspresi sintase nitrik oksida (iNOS) teraruh sebagai penanda polarisasi M1 proinflamasi dengan CBD-IL{{84} } terapi. Kami juga melihat perkembangan populasi cDC1 dan pengurangan populasi sel dendritik jenis 2 konvensional (cDC2) (Rajah 8e, Rajah Tambahan 19b). cDC1 telah terlibat dalam pengaktifan sel T CD sitotoksik antitumor{91}} dan mekanisme potensi rintangan terapeutik. Kami tidak menemui tanda-tanda pemindahan sel ke tumor manakala cDC2 adalah penting untuk pengaktifan perbezaan ketara dalam nisbah KLRG1+ dan KLRG1- pembunuh semula jadi CD4+ sel T termasuk Tregs67 . Selaras dengan penemuan cDC2, sel merentas kumpulan rawatan (Tambahan Rajah 19d). Pemprofilan frekuensi CD4+ FOXP3+ Tregs menunjukkan penurunan dalam Tregs asso- F40/80+ SiglecF+ eosinofil telah meningkat manakala Ly6G+ neusiasi dengan terapi CBD-IL-12 (Tambahan Rajah 19c). Menariknya, trofil telah dikurangkan dengan penambahan CBD-IL-12 kepada STEAP1- kami memerhatikan bahawa dalam tumor berulang selepas gabungan STEAP1-mBBζ mBBζ terapi sel T CAR (Gamb. 8f, g). Terutama sekali, kekerapan terapi sel T CAR dan CBD-IL{116}} ini terdapat penurunan dalam cDC1 dan neutrofil yang berkaitan dengan tumor telah meningkat dengan rawatan dengan peningkatan Treg, yang membabitkan pengurangan penyebuan CD8 STEAP sitotoksik{{120 }}mBBζ sel T CAR berbanding sel T yang tidak ditransduksi (54 berbanding sel T dan pengayaan isyarat Treg imunosupresif sebanyak 34%), berkurangan dalam keadaan dengan terapi CBD-IL-12, tetapi meningkat apabila tumor berulang selepas STEAP digabungkan Terapi 1-mBBζ CAR T cell dan CBD-IL{127}} (19 hingga 42%). Penemuan ini menunjukkan bahawa sifat imunosupresif neutrofil yang berkaitan dengan tumor mungkin memainkan peranan penting dalam mengantarkan rintangan rawatan dan perkembangan tumor. Secara keseluruhan, analisis ini menunjukkan bahawa rawatan CBD-IL-12 mengembalikan persekitaran tumor imunosupresif yang bermusuhan kepada keadaan pro-radang dan meluaskan aktiviti antitumor bersama-sama dengan terapi sel STEAP1-mBBζ CAR T yang dipindahkan secara diterima pakai. Kami selanjutnya melakukan analisis repertoir TCR menggunakan penjujukan rantai beta TCR berasaskan PCR multipleks pada tumor yang membawa paru-paru yang dikumpulkan daripada setiap kumpulan rawatan di nekropsi. Kami melihat penurunan ketara dalam klonaliti Simpson dalam sampel daripada tikus yang dirawat dengan CBD-IL-12 sahaja dan digabungkan dengan terapi sel T{140}}mBBζ CAR STEAP yang menunjukkan peningkatan kepelbagaian sel T intratumoral (Gamb. 8j). Penemuan ini membuktikan bahawa penambahan CBD-IL{143}} sebagai tambahan kepada terapi sel T CAR STEAP1 mungkin bermanfaat melalui pembentukan semula persekitaran mikro tumor kanser prostat, meningkatkan pemprosesan dan pembentangan antigen serta melibatkan imuniti perumah untuk menggalakkan penyebaran epitop.
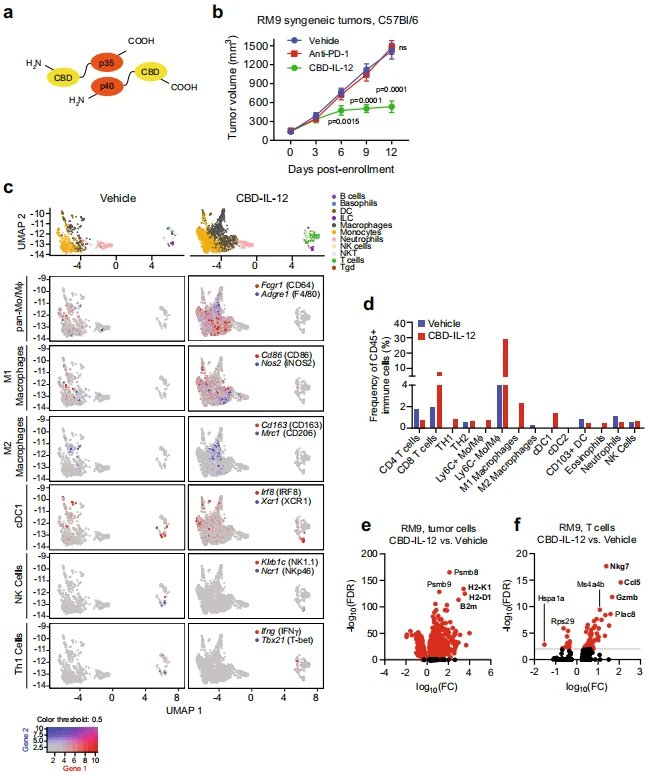
Rajah 6|Terapi gabungan sitokin domain pengikat kolagen sistemik IL-12 (CBD-IL-12) menghalang pertumbuhan tumor kanser prostat dan memprogram semula persekitaran mikro imun tumor. Skema CBD-IL-12, terdiri daripada subunit p35 dan p40 yang digabungkan dengan CBD daripada domain faktor von Willebrand A3. b Isipadu tumor subkutaneus RM9 dalam tikus syngeneic C57Bl/6 dari masa ke masa dengan rawatan dengan kenderaan, anti-PD-1 (klon 29 F.1A12) 200 Μg melalui suntikan intraperitoneal setiap 5 hari, atau CBD-IL-12 25 Μg melalui suntikan intravena setiap 5 hari bermula pada hari 0. n=7 tikus dalam kenderaan dan CBD-IL-12 kumpulan yang dirawat dan n=8 tikus dalam anti -Kumpulan yang dirawat PD1. p < 0.0001 pada hari 9 dan 12. Bar mewakili min dengan SEM. Nilai-P diperoleh daripada ANOVA dua hala dengan ujian perbandingan berbilang Dunnett, ns tidak signifikan. c Plot Penghampiran dan Unjuran Manifold Seragam (UMAP) subset sel imun yang berbeza (atas) daripada analisis RNA-seq (scRNA-seq) sel tunggal bagi lima tumor RM9 setiap satu diagregatkan daripada tikus yang dirawat dengan kenderaan atau CBD-IL{{41} }. Plot UMAP diwarnakan dengan ekspresi gen penanda khusus subset sel imun untuk pan-monosit/makrofaj, makrofaj terpolarisasi M1 dan M2, sel dendritik jenis 1 konvensional (cDC1), sel pembunuh semulajadi (NK) dan jenis pembantu T 1 (Th1) sel. d Plot yang menunjukkan kekerapan populasi sel imun tertentu (berbanding dengan CD{50}} sel imun) yang dikenal pasti melalui analisis scRNA-seq termasuk CD4+ dan CD8+ sel T, Th1 (Infg+ Tbx{ {56}} ) dan sel Th2 (cMAF+ Gata3+), Ly6C+/− monosit/makrofaj (Ly6C+/− Adgre1+ ), makrofaj M1 (CD80+ CD{{67} } INOS2+ ), makrofaj M2 (CD163+ Mrc1+ cMAF+ ), cDC1 (XCR1+ IRF8+ ), sel dendritik jenis 2 konvensional (cDC2 , CD1+ IRF4+ ), CD migrasi103+ sel dendritik (Itgae+ ), eosinofil (SiglecF+ ), neutrofil (Ly6G+) dan sel NK (Klrb1c+ Ncr1+ ) dalam tumor yang dirawat dengan kenderaan atau CBDIL-12. Plot gunung berapi menunjukkan ekspresi gen berbeza dalam (e) sel tumor dan (f) sel T daripada tumor RM9 tikus yang dirawat CBD-IL-12 berbanding dengan yang dirawat dengan kenderaan. Perubahan lipatan FC, kadar penemuan palsu FDR. Data sumber disediakan dalam fail Data Sumber.
Perbincangan
Keberkesanan terapi sel T CAR dan terapeutik sasaran berasaskan imun yang lain sangat bergantung pada ekspresi antigen yang konsisten pada semua atau kebanyakan sel yang terdiri daripada populasi tumor dalam pesakit individu. Walau bagaimanapun, heterogeniti antigen dinyatakan dalam tumor pepejal termasuk kanser prostat, di mana perkembangan kepada mCRPC dan rintangan rawatan dikaitkan dengan kemunculan subtipe penyakit berbeza yang ditandakan oleh program transkrip yang berbeza-71 dan ekspresi antigen permukaan sel. Walaupun PSMA dianggap sebagai salah satu biomarker terulung dalam kanser prostat dengan ekspresi berlebihan yang ketara ditemui merentasi spektrum perkembangan penyakit, kerja kami menyokong penemuan daripada penerbitan baru-baru ini14 yang menunjukkan bahawa ekspresi PSMA adalah heterogen dalam mCRPC yang mematikan. Kami menunjukkan bahawa STEAP1 dinyatakan secara lebih luas daripada PSMA dalam tetapan ini tetapi sama sekali tidak dinyatakan secara seragam pada tahap tinggi dalam semua tisu mCRPC. Tiada terapi sasaran antigen tunggal termasuk terapi sel T CAR mungkin dapat mengatasi heterogeniti antigen tumor yang sedia ada dalam mCRPC. Oleh itu, adalah sangat penting untuk memastikan sasaran terapeutik tambahan dengan teliti seperti STEAP1 dalam mCRPC yang mungkin membolehkan terapi gabungan yang memberikan tekanan terapeutik yang tidak dapat diatasi. Ini termasuk terapi sel T CAR yang disasarkan dwi antigen (cth, PSMA dan STEAP1) atau strategi multimodal yang menggabungkan terapi sel T CAR dengan ADC, T-BsAbs atau rawatan lain yang berpotensi menggalakkan pembunuhan tumor bebas dan bergantung kepada antigen. Kami merekayasa terapi sel T CAR STEAP{12}}yang sangat spesifik antigen dan menyetempatkan epitope yang diiktiraf oleh CAR secara fungsional kepada ECD kedua STEAP1. STEAP1-Sel T BBζ CAR kami menunjukkan aktiviti antitumor yang besar terhadap pelbagai model kanser prostat yang disebarkan dalam kajian manusia-dalam-tikus dan tetikus-dalam-tikus. Yang penting, STEAP1-BBζ CAR kami mampu mendorong pengaktifan sel T dan sitolisis sel sasaran walaupun dalam keadaan ketumpatan antigen yang rendah, seperti yang dibuktikan oleh kereaktifan terhadap model kanser prostat PC3. Walau bagaimanapun, kepekaan sel STEAP1-BBζ CAR T ini kepada tahap ekspresi STEAP1 yang rendah mungkin berfaedah dari perspektif meningkatkan keberkesanan antitumor tetapi juga boleh menyerlahkan liabiliti daripada ketoksikan luar tumor atas sasaran. Ekspresi sistemik STEAP1 sebelum ini telah dilaporkan hampir tidak terdapat dalam tisu manusia normal18,72 kecuali kelenjar prostat di mana ekspresi membran dalam sel epitelium prostat telah diterangkan27. Untuk menyelidiki keselamatan terapi sel T STEAP1-BBζCAR dalam tetapan praklinikal, kami menghasilkan model tetikus STEAP1 yang dimanusiakan. Model tetikus hSTEAP1-KI merumuskan semula ekspresi STEAP1 manusia dalam kelenjar prostat dan menunjukkan ekspresi dalam korteks adrenal. Secara meyakinkan, terapi sel T STEAP1-BBζ CAR T pada dos yang mencukupi untuk mendorong aktiviti antitumor tidak membawa kepada ketoksikan sistemik yang jelas dalam tikus KI hSTEAP1-termasuk ketoksikan luar tumor atas sasaran di tapak STEAP1 manusia ungkapan. Mekanisme berulang kanser prostat berulang dan perkembangan selepas terapi sel STEAP1-BBζ CAR T dalam kajian kami ialah pelepasan antigen tumor. Di satu pihak, penemuan ini menekankan potensi keseluruhan terapi sel T STEAP1-BBζ CAR T. Walau bagaimanapun, tidak jelas sama ada kehilangan ekspresi STEAP1 tumor adalah semata-mata disebabkan oleh heterogeniti antigen tumor yang wujud atau sama ada terdapat juga pengurangan penyesuaian ekspresi STEAP1. Penerbitan baru-baru ini menunjukkan bahawa metilasi promoter STEAP1 memodulasi ekspresi STEAP1 dan penyahkawalseliaan epigenetik oleh DNA metiltransferase dan perencatan deacetylase histon adalah mencukupi untuk mengawal selia ekspresi STEAP173 dengan ketara. Rawatan dengan perencat epigenetik dalam kombinasi dengan terapi sel T STEAP1 CAR boleh meningkatkan ekspresi STEAP1 tumor secara serentak dan memprogram semula sel T CAR kepada keadaan pembezaan tahan keletihan yang menggalakkan74,75, dengan itu mengurangkan kehilangan antigen tumor dan meningkatkan keberkesanan antitumor dalam kanser prostat. Kajian kami juga melibatkan STEAP1 sebagai memainkan peranan berfungsi dalam mengawal perkembangan kitaran sel dan metabolisme selular dalam kanser prostat. STEAP1 adalah unik daripada ahli keluarga STEAP lain (STEAP2, 3, dan 4) kerana ia tidak mempunyai domain oxidoreductase intraselular22 yang diperlukan untuk aktiviti metallo reduktase. Akibatnya, homotrimer STEAP1, tetapi bukan heterotrimer dengan protein STEAP lain, tidak mempunyai fungsi enzimatik untuk mengurangkan Fe3+ kepada Fe2+ dan Cu2+ kepada Cu1+. Sama ada dan bagaimana penglibatan STEAP1 dalam ion logam dan metabolisme selular menggalakkan perkembangan kanser masih belum ditentukan dan layak untuk penyiasatan lanjut. Persekitaran mikro tumor 'sejuk' secara imunologi bagi kanser prostat adalah penghalang utama kepada keberkesanan imunoterapi kanser. Sebagai contoh, kajian penerokaan yang dikaitkan dengan percubaan klinikal fasa I terapi sel T PSMA CAR yang berperisai untuk menyatakan reseptor faktor pertumbuhan transformasi dominan-negatif (TGF R-DN) dalam mCRPC menunjukkan bahawa ekspresi molekul isyarat imunosupresif dalam persekitaran mikro tumor meningkat. selepas infusi CAR T13. Dalam kajian kami, penemuan kritikal ialah perkaitan antara kehilangan ekspresi STEAP1 dan downregulation pemprosesan dan pembentangan antigen, kedua-duanya dalam sel kalah mati STEAP1 dan tumor kehilangan antigen STEAP1 selepas terapi sel T STEAP1-BBζ CAR T. Oleh itu, kehilangan antigen STEAP1 dalam kanser prostat menggalakkan bukan sahaja penentangan langsung kepada terapi sel T STEAP1-BBζ CAR T tetapi mungkin juga mengehadkan imuniti antitumor adaptif hos. Kehilangan ekspresi antigen sasaran tumor dan penukaran kepada keadaan yang lebih imunosupresif dengan peningkatan penyusupan Tregs dan ekspresi molekul imunosupresif yang lebih tinggi juga telah diperhatikan dalam kajian fasa I sel T CAR EGFR-vIII dalam peserta dengan glioblastoma76 berulang. Kerja tambahan akan diperlukan untuk memahami mekanisme fungsian yang mendasari kehilangan antigen STEAP1 dan secara amnya bagaimana kesan dinamik terapi sel T CAR angkat boleh menyumbang kepada kehilangan antigen dan immunoediting dengan memodulasi interaksi tumor-imun-stromal dalam tumor pepejal.
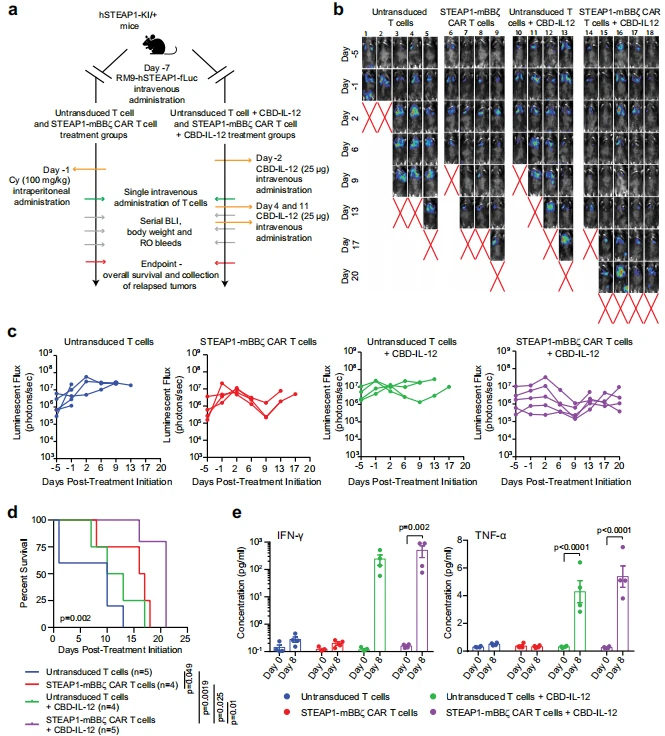
Rajah 7|Menggabungkan CBD-IL-12 dengan terapi STEAP1-mBBζ CAR T sel meningkatkan kemandirian keseluruhan dan tahap sitokin radang. Skema percubaan cabaran tumor untuk model penyebaran RM9-hSTEAP1 dalam tikus hSTEAP1-KI/+ yang menyiasat gabungan CBD-IL-12 dengan STEAP{{1{{18} }}} Terapi sel T CAR mBBζ. Cy cyclophosphamide (untuk prakondisi). Dicipta dengan BioRender.com. b BLI hidup bersiri hSTEAP1-KI/ + tikus yang dicantumkan dengan metastasis fLuc RM9-hSTEAP1- dan dirawat dengan suntikan intravena tunggal sebanyak 5 × 10⁶ tetikus tidak ditransduksi Sel T atau sel T STEAP1-mBBζ CAR T pada hari 0 dengan atau tanpa rawatan CBD-IL- 12 setiap minggu. Merah X menandakan tikus mati. Skala sinaran ditunjukkan. (c) Plot yang menunjukkan kuantifikasi jumlah fluks dari semasa ke semasa daripada BLI hidup setiap tetikus dalam (b). d Keluk kelangsungan hidup Kaplan–Meier tikus dalam (b) dengan kepentingan statistik ditentukan oleh ujian peringkat log (Mantel-Cox) (p=0.002). e Plot menunjukkan tahap sitokin serum IFN- (kiri, p=0.002) dan TNF- (kanan, p < 0.0001) berdasarkan immunoassays ProcartaPlex daripada pendarahan retroorbital tikus hSTEAP1-KI/+ ( n=4 tikus setiap kumpulan) mengandungi RM9-hSTEAP1-metastasis fLuc sebelum (hari 0) dan selepas rawatan (hari ke-8) dengan sel T tetikus yang tidak ditransduksi atau STEAP tetikus{{38} }mBBζ sel T CAR dengan atau tanpa terapi CBD-IL-12. Bar ralat mewakili min dengan SEM. Untuk panel (e), nilai-p diperoleh daripada ANOVA dua hala dengan ujian perbandingan berbilang Sidak. Data sumber disediakan dalam fail Data Sumber.

Rajah 8|Menggabungkan CBD-IL-12 dengan terapi sel STEAP1-mBBζ CAR T memprogram semula persekitaran mikro imun tumor dan menggalakkan pembentangan antigen dan penyebaran epitop. Fotomikrograf STEAP1 (atas), B2m (tengah) dan CD3 (bawah) pewarnaan IHC sebanyak RM9-hSTEAP1 tumor paru-paru selepas rawatan dengan sel T tidak transduksi tetikus atau sel STEAP1-mBBζ CAR T dengan atau tanpa rawatan CBD-IL{11}}. Bar skala=50 µm. b Plot bar menunjukkan kuantifikasi IHC bagi sel positif CD3 yang menyusup ke tumor paru-paru metastatik (n=4 tumor setiap kumpulan). ANOVA sehala p=0.{{80}}021. Bar ralat mewakili min dengan SD. Plot menunjukkan frekuensi (c) Ly6C− F4/{{20}} MHC-II+ (kiri, ANOVA sehala p=0.00{ {98}}5) dan Ly6C − F4/80+ iNOS2+ (kanan, ANOVA sehala p=0.0017) makrofaj, (d) Ly6C+ F4/ {{36} } MHC-II+ (kiri, ANOVA sehala p=0.0038) dan Ly6C+ F4/80+ iNOS2+ (kanan, ANOVA sehala p=ns) makrofaj, (e) CD11b+ XCR1+ cDC1 (ANOVA sehala p=0.0003), (f) F4/80+ eosinofil SiglecF+ (ANOVA sehala p=0. 0008), dan (g) neutrofil Ly6G+ (ANOVA sehala p=0.0035) dinormalkan kepada jumlah sel CD45+ seperti yang ditentukan oleh sitometri aliran multiparametrik selepas rawatan dengan sel T tidak tertransduksi, STEAP{{67 }}sel T CAR mBBζ, sel T tidak transduksi dan CBD-IL-12 dan STEAP1- sel T CAR mBBζ dan CBD-IL-12 pada tindak balas rawatan maksimum (nadir) dan kambuh semula tumor (kambuh semula). h Plot bar yang mewakili klonaliti Simpson sebagai ukuran 'kesetaraan' repertoir TCR yang dianalisis oleh penjujukan TCRB pada sel-sel penyusupan tumor yang dikumpulkan daripada tikus dalam (a). n=4 tumor setiap kumpulan. Nilai-P untuk sel T tak tertransduksi + CBD-IL-12 berbanding sel T tak tertransduksi dan sel T STEAP1-mBBζ CAR T adalah 0.008 dan 0.02, masing-masing; dan sel T STEAP1-mBBζ CAR + CBD-IL-12 berbanding sel T yang tidak ditransduksi dan STEAP1-mBBζ CAR T ialah 0.004 dan 0.01, masing-masing. Bar ralat mewakili min dengan SD. Untuk panel (c–g) n=3 tumor setiap kumpulan, *p < 0.05; **p <0.01, ***p <0.001, nilai-p dalam panel (b–h) adalah daripada ANOVA sehala dengan ujian perbandingan berbilang Dunn. Data sumber disediakan dalam fail Data Sumber.
Untuk meluaskan tindak balas antitumor, kami menyiasat pentadbiran sistemik CBD-IL-12 dalam kombinasi dengan terapi sel STEAP1-BBζ CAR T dalam model tumor RM9-hSTEAP1 yang disebarkan dan syngeneik dalam hSTEAP 1-Tikus KI untuk menganggarkan sifat imunosupresif mCRPC berdasarkan pencirian terdahulu RM9 sebagai model kurang imunogenik57,77. Rawatan bersama dengan CBD-IL12 membawa kepada peningkatan dalam kemandirian keseluruhan, pengeluaran sitokin, pembentangan antigen tumor, dan kepelbagaian sel T intratumoral yang konsisten dengan penyebaran epitope. Penyiasatan rapi terhadap persekitaran mikro imun tumor mendedahkan bahawa penambahan CBD-IL-12 pada terapi sel STEAP1-BBζ CAR T mendorong pembalikan stroma tumor dan meningkatkan makrofaj dan cDC1 yang diaktifkan sambil mengurangkan neutrofil yang berkaitan dengan tumor. Walau bagaimanapun, penawar itu tidak dicapai dalam kajian kami, dan kami menyerlahkan potensi pampasan, mekanisme penyesuaian rintangan dan perkembangan tumor termasuk peningkatan frekuensi neutrofil imunosupresif dan cDC2 yang mungkin menggalakkan induksi Treg. Adalah penting untuk ambil perhatian bahawa pengoptimuman lanjut bagi dos dan jadual pentadbiran CBD-IL{19}} mungkin diperlukan untuk memaksimumkan tindak balas antitumor. Walau bagaimanapun, keputusan ini menyokong penyiasatan pendekatan imunoterapeutik gabungan seperti memperisai sel T CAR untuk menyatakan sitokin rekombinan78 (cth, IL-2, IL-12, IL-15 atau IL{{24 }}), rawatan serentak dengan imunomodulator (cth, anti-PD-1/PD-L1 atau anti-CTLA4), atau radioterapi terarah tumor untuk merombak persekitaran mikro tumor kanser prostat dan meningkatkan fungsi efektor sel T CAR. Semasa manuskrip ini dalam persediaan, satu kajian dari kumpulan di Norway melaporkan perkembangan praplinikal terapi sel T CAR STEAP1 dengan aktiviti antitumor dalam model 22Rv1 subkutaneus dalam tikus immunocompromised79. STEAP1 CAR yang dilaporkan berbeza daripada STEAP1-BBζ CAR kerana ia menggabungkan scFv sintetik yang dipanggil Oslo1 dan domain engsel dan transmembran CD8. Satu lagi ciri pembezaan ialah sel T STEAP1-BBζ CAR T disediakan sebagai produk yang ditentukan dengan nisbah normal sel T CD4/CD8 manakala sel T Oslo1 STEAP1 CAR tidak. Mekanisme penentangan dan kajian keselamatan yang berkaitan dengan terapi sel T Oslo1 STEAP1 CAR tidak dilaporkan. Walau bagaimanapun, adalah menarik untuk melihat bagaimana perbezaan dalam kejuruteraan CAR dan komposisi produk sel ini boleh memberi kesan kepada keberkesanan antitumor, ketekunan dan keselamatan kerana kedua-dua terapi sel T CAR STEAP1 Oslo1 dan terapi sel STEAP1-BBζ CAR T kami. program diterjemahkan ke klinik. Penemuan kajian kami telah membawa kepada perkongsian dengan Program Terapeutik Eksperimen (NExT) Institut Kanser Kebangsaan (NCI) untuk menterjemahkan terapi sel T STEAP1-BBζ CAR T kepada percubaan pertama dalam manusia untuk lelaki dengan mCRPC. Isyarat keselamatan dan keberkesanan daripada percubaan klinikal fasa awal ini akan membantu menentukan sama ada mungkin terdapat nilai dalam menyiasat pendekatan terapeutik ini untuk jenis kanser lain yang sangat mengekspresikan STEAP1.
Rujukan
1. Siegel, RL, Miller, KD, Fuchs, HE & Jemal, A. Statistik kanser, 2022. CA: Cancer J. Clinicians 72, 7–33 (2022).
2. Armstrong, AJ et al. Ramalan kelangsungan hidup lima tahun dan hasil keselamatan dengan enzalutamide pada lelaki dengan kanser prostat tahan kastrasi metastatik naif kemoterapi daripada Percubaan PREVAIL. Eur. Urol. 78, 347–357 (2020).
3. Fizazi, K. et al. Abiraterone ditambah prednison dalam kanser prostat metastatik, sensitif pengebirian. N. Inggeris. J. Med. 377, 352–360 (2017).
4. Scher, HI et al. Peningkatan kelangsungan hidup dengan enzalutamide dalam kanser prostat selepas kemoterapi. N. Inggeris. J. Med. 367, 1187–1197 (2012).
5. Parker, C. et al. Radium pemancar alfa-223 dan kemandirian dalam kanser prostat metastatik. N. Inggeris. J. Med. 369, 213–223 (2013).
6. Sartor, O. et al. Lutetium-177–PSMA-617 untuk kanser prostat tahan pengebirian metastatik. N. Inggeris. J. Med. 385, 1091–1103 (2021).
7. Kantoff, PW et al. Imunoterapi Sipuleucel-T untuk kanser prostat tahan kastrasi. N. Inggeris. J. Med. 363, 411–422 (2010).
8. Jackson, HJ, Rafiq, S. & Brentjens, RJ Memandu sel-T CAR ke hadapan. Nat. Rev. Clin. Oncol. 13, 370–383 (2016).
9. Weiner, GJ Membina terapeutik berasaskan antibodi monoklonal yang lebih baik. Nat. Rev. Kanser 15, 361–370 (2015).
10. Chavez, JC, Bachmeier, C. & Kharfan-Dabaja, MA CAR terapi sel T untuk limfoma sel B: keputusan percubaan klinikal produk yang tersedia. Adv. Terapeutik Hematol. 10, 2040620719841581 (2019).
11. Terapi sel Sterner, RC & Sterner, RM CAR-T: had semasa dan strategi berpotensi. Kanser darah J. 11, 69 (2021).
12. Slovin, SF et al. Kajian fasa 1 sel CAR-T P-PSMA-101 pada pesakit dengan kanser prostat (mCRPC) yang tahan pengebirian metastatik. J. Clin. Oncol. 40, 98–98 (2022).
13. Narayan, V. et al. TGF yang menyasarkan PSMA -sel T CAR berperisai tidak sensitif dalam kanser prostat tahan kastrasi metastatik: percubaan fasa 1. Nat. Med. 28, 724–734 (2022).
14. Paschalis, A. et al. Kepelbagaian antigen membran khusus prostat dan kecacatan pembaikan DNA dalam kanser prostat. Euro. Urol. 76, 469–478 (2019).
15. Chen, N., Li, X., Chintala, NK, Tano, ZE & Adusumilli, PS Memandu KERETA di jalan tidak rata heterogen antigen dalam tumor pepejal. Curr. Pendapat. Immunol. 51, 103–110 (2018).
16. Morgan, RA et al. Laporan kes kejadian buruk yang serius berikutan pentadbiran sel T yang ditransduksi dengan reseptor antigen chimeric yang mengiktiraf ERBB2. Mol. Di sana. J. Am. Soc. Gene Ther. 18, 843–851 (2010).
17. Lee, JK et al. Pemprofilan permukaan sistemik mengenal pasti antigen sasaran untuk terapi berasaskan imun dalam subtipe kanser prostat lanjutan. Proc. Natl. Acad. Sci. USA 115, E4473–e4482 (2018).
18. Hubert, RS et al. STEAP: antigen permukaan sel khusus prostat yang sangat dinyatakan dalam tumor prostat manusia. Proc. Natl Acad. Sci. USA 96, 14523–14528 (1999).
19. Nolan-Stevaux, O. DDT Abstrak02-03: AMG 509: Sebuah novel, dimanusiakan, dilanjutkan separuh hayat, bispecific STEAP1 × CD3 T sel merekrut XmAb® 2+1 antibodi. Kanser Re. 80, DDT02-03-DDT02-03 (2020).
20. Grunewald, TG et al. Ekspresi STEAP1 yang tinggi dikaitkan dengan hasil yang lebih baik dalam pesakit sarkoma Ewing. Ann. Oncol. Mati. J. Eur. Soc. Med. Oncol. 23, 2185–2190 (2012).
21. Moreaux, J., Kassambara, A., Hose, D. & Klein, B. STEAP1 adalah lebih dinyatakan dalam kanser: sasaran terapeutik yang menjanjikan. Biokim. Biophys. Res. Commun. 429, 148–155 (2012).
22. Oosterheert, W. & Gros, P. Struktur mikroskop elektron cryo dan potensi fungsi enzimatik antigen epitelium enam transmembran manusia prostat 1 (STEAP1). J. Biol. Kimia. 295, 9502–9512 (2020).
23. Jiao, Z. et al. Antigen epitelium enam transmembran bagi ekspresi prostat 1 menggalakkan metastasis kanser ovari dengan membantu perkembangan peralihan epitelium-ke-mesenchymal. Histochem. Biol Sel. 154, 215–230 (2020).
24. Gomes, IM, Arinto, P., Lopes, C., Santos, CR & Maia, CJ STEAP1 terlalu tertekan dalam kanser prostat dan lesi neoplasia intraepithelial prostat, dan ia dikaitkan secara positif dengan skor Gleason. Dalam onkologi Urologi: seminar dan penyiasatan asal. jld. 32, 53.e23–53.e29 (Elsevier, 2014).
25. Huo, S.-f. et al. STEAP1 memudahkan metastasis dan peralihan epitelium-mesenchymal adenokarsinoma paru-paru melalui laluan isyarat JAK2 / STAT3. Biosci. Rep. 40, BSR20193169 (2020).
26. Gomes, IM et al. Penghancuran STEAP1 menghalang pertumbuhan sel dan mendorong apoptosis dalam sel kanser prostat LNCaP yang menentang kesan androgen. Med. Oncol. 35, 1–10 (2018).
27. Protein Gomes, IM, Maia, CJ & Santos, CR STEAP: daripada struktur kepada aplikasi dalam terapi kanser. Mol. Kanser Re. MCR 10, 573–587 (2012).
28. Danila, DC et al. Kajian Fasa I tentang DSTP3086S, konjugat ubat antibodi yang menyasarkan antigen epitelium enam transmembrane prostat 1, dalam kanser prostat tahan pengebirian metastatik. J. Clin. Oncol. Mati. J. Am. Soc. Clin. Oncol. 37, 3518–3527 (2019).
29. Kelly, WK et al. Kajian Fasa I tentang AMG 509, sel STEAP1 x CD3 T yang merekrut terapi imun XmAb 2+1, pada pesakit dengan kanser prostat (mCRPC) yang tahan pengebirian metastatik. J. Clin. Oncol. 38, TPS5589–TPS5589 (2020).
30. Lin, T.-Y., Park, JA, Long, A., Guo, H.-F. & Cheung, N.-KV Novel kuat anti-STEAP1 antibodi bispecific untuk mengubah hala sel T untuk imunoterapi kanser. J. Immunother. Kanser 9, e003114 (2021).
31. Schober, SJ et al. MHC Kelas I-Terhad TCR-Transgenik CD4(+) Sel T Terhadap STEAP1 Mengantara Kawalan Tumor Tempatan Sarkoma Ewing Dalam Vivo. Sel 9, 1581 (2020).
32. Roudier, MP et al. Heterogenitas fenotip karsinoma prostat peringkat akhir metastatik ke tulang. Hum. Pathol. 34, 646–653 (2003).
33. Gomes, IM, Santos, CR, Socorro, S. & Maia, CJ Enam antigen epitelium membran trans prostat 1 dikawal oleh hormon seks dalam sel prostat. Prostat 73, 605–613 (2013).
34. Sharp, A. et al. Ekspresi varian sambatan reseptor androgen-7 muncul dengan rintangan pengebirian dalam kanser prostat. J. Clin. melabur. 129, 192–208 (2019).
35. Bakht, MK et al. Pembezaan neuroendokrin kanser prostat membawa kepada penindasan PSMA. Endokr.-Berkaitan. Kanser 26, 131–146 (2018).
36. Ihlaseh-Catalano, SM et al. Ekspresi berlebihan protein STEAP1 adalah penanda bebas untuk pengulangan biokimia dalam karsinoma prostat. Histopatologi 63, 678–685 (2013).
37. Gomes, IM et al. Penghancuran STEAP1 menghalang pertumbuhan sel dan mendorong apoptosis dalam sel kanser prostat LNCaP yang menentang kesan androgen. Med. Oncol. 35, 40 (2018).
38. Logan, AC et al. Faktor-faktor yang mempengaruhi titer dan infektiviti vektor lentiviral. Hum. Gene Ther. 15, 976–988 (2004).
39. Morgan, RA, Grey, D., Lomova, A. & Kohn, DB Terapi gen sel stem hematopoietik: kemajuan dan pengajaran yang dipelajari. Sel Stem Sel 21, 574–590 (2017).
40. Larson, SM et al. Perkembangan pra-klinikal pengubahsuaian gen sel stem hematopoietik dengan reseptor antigen chimeric untuk imunoterapi kanser. Hum. Vaksin Immunother. 13, 1094–1104 (2017).
41. Salter, AI et al. Analisis fosfoproteomik isyarat reseptor antigen chimeric mendedahkan perbezaan kinetik dan kuantitatif yang mempengaruhi fungsi sel. Sci. Isyarat. 11, eat6753 (2018).
42. Majzner, RG et al. Menala keperluan ketumpatan antigen untuk aktiviti sel T CAR. Discov Kanser. 10, 702–723 (2020).
43. Challita-Eid, PM et al. Antibodi monoklonal kepada enam antigen epitelium transmembran prostat-1 Menghalang Komunikasi Antara Sel In vitro dan pertumbuhan xenograf tumor manusia In vivo. Kanser Re. 67, 5798–5805 (2007).
44. Hudecek, M. et al. Domain spacer ekstraselular bukan isyarat bagi reseptor antigen chimeric adalah penentu untuk aktiviti antitumor in vivo. Kanser Imunol. Res. 3, 125–135 (2015).
45. Gomes, IM, Santos, CR & Maia, CJ Expression of STEAP1 dan STEAP1B dalam talian sel prostat, dan peraturan putatif STEAP1 oleh mekanisme pasca transkripsi dan pasca translasi. Kanser Gen 5, 142–151 (2014).
46. Bernsel, A., Viklund, H., Hennerdal, A. & Elofsson, A. TOPCONS: ramalan konsensus topologi protein membran. Asid Nukleik Res. 37, W465–W468 (2009).
47. Krogh, A., Larsson, B., Von Heijne, G. & Sonnhammer, EL Meramalkan topologi protein transmembran dengan model Markov tersembunyi: aplikasi untuk melengkapkan genom. J. Mol. biol. 305, 567–580 (2001).
48. Long, AH et al. 4-1Kostimulasi BB memperbaiki keletihan sel T yang disebabkan oleh isyarat tonik reseptor antigen chimeric. Nat. Med. 21, 581–590 (2015).
49. Berger, C. et al. Pemindahan pakai CD effector8+ Sel T yang diperoleh daripada sel memori pusat mewujudkan memori sel T yang berterusan dalam primata. J. Clin. Menyiasat. 118, 294–305 (2008).
50. Gattinoni, L. et al. Subset sel T ingatan manusia dengan sifat seperti sel stem. Nat. Med. 17, 1290–1297 (2011).
51. Xu, Y. et al. Sel stem memori T yang berkait rapat berkait rapat dengan pengembangan in vivo CAR.CD19-sel T dipelihara oleh IL-7 dan IL-15. Darah 123, 3750–3759 (2014).
52. Cieri, N. et al. IL-7 dan IL-15 mengarahkan penjanaan sel T stem memori manusia daripada prekursor naif. Darah 121, 573–584 (2013).
53. Hansel, DE et al. Mutasi gen TP53 yang dikongsi dalam karsinoma neuroendokrin sel kecil primer dan adenokarsinoma prostat yang berbeza secara morfologi dan fenotip. Prostat 69, 603–609 (2009).
54. Cuzick, J. et al. Nilai prognostik tandatangan ekspresi RNA yang diperoleh daripada gen percambahan kitaran sel pada pesakit dengan kanser prostat: kajian retrospektif. Lancet Oncol. 12, 245–255 (2011).
55. Chen, ME, Lin, SH, Chung, LW & Sikes, RA Pengasingan dan pencirian PAGE-1 dan GAGE-7. Gen baru yang dinyatakan dalam model perkembangan kanser prostat LNCaP yang berkongsi homologi dengan antigen yang berkaitan dengan melanoma. J. Biol. Kimia. 273, 17618–17625 (1998).
56. Baley, PA, Yoshida, K., Qian, W., Sehgal, I. & Thompson, TC Kemajuan kepada ketidakpekaan androgen dalam model tetikus in vitro novel untuk kanser prostat. J. Biokimia Steroid. Mol. biol. 52, 403–413 (1995).
57. Murad, JP et al. Pra-kondisi mengubah TME untuk meningkatkan keberkesanan sel CAR T tumor pepejal dan imuniti pelindung endogen. Mol. Di sana. J. Am. Soc. Gene Ther. 29, 2335–2349 (2021).
58. Brunda, MJ et al. Aktiviti antitumor dan antimetastatik interleukin 12 terhadap tumor murine. J. Exp. Med. 178, 1223–1230 (1993).