Vaksinasi Virus Autogen Ibu Tidak Aktif Meningkatkan Imuniti Kepada PRRSV dalam Babi Bahagian 1
Jun 29, 2023
Abstrak:
Imuniti yang berasal dari ibu ialah komponen penting untuk kemandirian dan kejayaan anak dalam babi untuk melindungi daripada patogen yang beredar seperti Virus Sindrom Pembiakan dan Pernafasan Porcine Jenis 2 (PRRSV-2).
Tujuan kajian ini adalah untuk menyiasat pemindahan imuniti anti-PRRSV kepada anak babi daripada sepuhan yang menerima virus hidup-ubahsuai (MLV) sahaja (rawatan (TRT) 0), atau digabungkan dengan satu daripada dua autogen yang tidak aktif. vaksin (AIV, TRT 1 campur 2). Anak babi daripada sepuhan ini telah dicabar dengan ketegangan PRRSV-2 autogenous pada usia dua minggu dan tindak balas imun adaptif (IR) mereka dinilai sehingga 4 minggu selepas inokulasi (dpi).
IR humoral dan selular sistemik telah dianalisis dalam gilts pra-farrow, dalam babi, pra-inokulasi, dan pada 2 dan 4 wpi. Kedua-dua AIV melindungi sebahagian anak babi dengan patologi paru-paru yang berkurangan dan peningkatan berat badan; TRT 1 juga menurunkan viremia babi, yang paling baik dijelaskan oleh pengeluaran antibodi peneutral yang disebabkan oleh AIV dalam gilt dan pemindahannya kepada anak babi. Dalam anak babi, pra-inokulasi, pengeluar IFN sistemik utama ialah sel CD21 ditambah B. Daripada 0 kepada 4 wpi, peranan sel B ini merosot dan sel T CD4 menjadi pengeluar IFN-sistemik utama.
Virus hidup yang baik merujuk kepada virus yang tidak menyebabkan penyakit, dan ia mempunyai hubungan tertentu dengan imuniti tubuh manusia. Virus hidup boleh merangsang sistem imun manusia untuk menghasilkan tindak balas imun, dengan itu meningkatkan imuniti manusia. Kajian telah menunjukkan bahawa selepas tubuh manusia dijangkiti virus hidup, ia akan melepaskan beberapa mediator dan sitokin, yang boleh mengaktifkan sel imun, menggalakkan fungsi sistem imun, dan meningkatkan keupayaan tubuh untuk menentang virus.
Selain itu, virus benigna dan berdaya maju juga boleh menduduki sel secara kompetitif, menyukarkan patogen untuk menyerang dan membiak, dengan itu melindungi tubuh manusia daripada jangkitan lain. Oleh itu, jangkitan virus benigna dan hidup yang sesuai boleh meningkatkan imuniti manusia, tetapi jangkitan yang berlebihan boleh membawa kepada penyakit. Oleh itu, dalam kehidupan seharian, orang ramai harus memberi perhatian untuk mengawal jangkitan virus hidup dan meningkatkan imuniti melalui gaya hidup sihat. Dari sudut pandangan ini, kita perlu meningkatkan imuniti. Cistanche boleh meningkatkan imuniti dengan ketara. Abu daging mengandungi pelbagai bahan aktif secara biologi, seperti polisakarida, dua cendawan, dan Huangli, dll. Bahan-bahan ini boleh merangsang pelbagai fungsi sistem imun. sel seperti sel, meningkatkan aktiviti imun mereka.

Klik manfaat kesihatan cistanche
Di dalam paru-paru, sel T CD8 adalah sel primer dan sel T CD4 ialah pengeluar IFN- sekunder, termasuk subset novel sel CD8 -CCR7-CD4 T babi, sel CD4 TEMRA yang berpotensi dibezakan secara terminal. Ringkasnya, kajian ini menunjukkan bahawa vaksinasi AIV ibu boleh meningkatkan perlindungan anak babi pra-bercerai susu terhadap PRRSV-2; ia menunjukkan kepentingan memindahkan antibodi peneutral kepada anak babi, dan ia memperkenalkan dua subset sel imun baru dalam babi—sel B penghasil CD21 tambah IFN dan sel T CD8 −CCR7− CD4 T.
Kata kunci:
vaksinasi ibu; vaksin tidak aktif autogenous; pemindahan imuniti; tindak balas imun humoral; tindak balas imun pengantara sel; sel T; PRRSV; babi; IFN- menghasilkan sel B; sel TEMRA CD4.
1. Pengenalan
Imuniti terbitan ibu (MDI) dalam mamalia adalah simfoni yang mengagumkan ("kerumitan harmoni"—[1]). Dalam sistem ini, atau simfoni, seorang ibu memindahkan perlindungan imun (sementara dan/atau berkekalan) kepada anak-anaknya sama ada semasa kehamilan melalui plasenta, selepas kelahiran melalui rembesan susu, atau kedua-duanya [2]: manusia menerima imunoglobulin semasa kehamilan dan akhirnya melalui susu rembesan [3]; anjing dan tikus menerima imunoglobulin semasa kehamilan dan melalui rembesan susu, dan babi dan ternakan lain hanya menerima imunoglobulin melalui rembesan susu.
Sama seperti spesies lain, anak babi menerima MDI ini dalam bentuk imunoglobulin, sel imun, dan molekul lain yang berkaitan dengan imun [4,5]. Walaupun imunoglobulin boleh diterima daripada benih yang berbeza (= asuhan silang), hanya ibu kandung yang berjaya memindahkan sel imun kepada anak mereka [5], dan kuantiti pengambilan kolostrum dalam anak babi dengan ketara mengurangkan kematian dan meningkatkan prestasi [6 ]. Sel imun ini termasuk sel B [7], serta subset sel T yang berbeza—CD4, CD8, dan terutamanya sel T reseptor (TCR)- δ sel T [8].
Subset sel T ini kemudiannya boleh dibezakan lagi berdasarkan peringkat pembezaan dan corak homingnya. Dalam babi, rantai CD8 digunakan untuk membezakan CD8 - naif daripada CD8 ditambah antigen berpengalaman atau sel T CD4 memori [9-11]. Ekspresi reseptor chemokine (CCR) 7 membezakan lagi CCR7 ditambah nodus limfa homing daripada CCR7− sel T-homing tisu periferal [12]. Dengan gabungan analisis CD8 /CCR7, kita kemudiannya boleh membezakan berbilang subset sel T yang berbeza: CD8 −CCR7 ditambah sel T CD4 naif, CD8 ditambah CCR7 ditambah memori pusat (TCM) sel T CD4 dan CD8 ditambah CCR7− memori efektor (TEM ) sel T CD4; tisu periferal-homing CCR7− dan nodus limfa homing CCR7 ditambah CD8 sel T, dan CD8 −CCR7−, CD8 ditambah CCR7−, dan CD8 ditambah CCR7 ditambah TCR- δ sel T.
Walaupun kami sebelum ini melaporkan bahawa sel TCR-δ babi babi mempunyai corak homing songsang berbanding rakan TCR- mereka, peranan khusus subset yang berbeza ini masih belum diterangkan [13]. Kedua-duanya, subset sel imun dan antibodi dipindahkan kepada anak untuk melindungi mereka daripada pelbagai patogen [4,5].
Selama beberapa dekad, patogen yang paling berbahaya untuk babi ialah Virus Sindrom Reproduktif dan Pernafasan Porcine (PRRSV, [14,15]). Dua jenis utama PRRSV wujud— jenis 1 dan 2 (PRRSV-1 dan 2); kepelbagaian tinggi dan kapasiti imunosupresif mereka menjadikan PRRSV sebagai penyakit bermasalah, membawa kepada kerugian ekonomi yang besar bagi industri babi [16] dan setakat ini, sementara vaksin memberikan perlindungan separa terhadap PRRSV, mereka tidak dapat mengawal sepenuhnya penyakit ini.
Dua jenis vaksin utama tersedia untuk melindungi daripada vaksin virus hidup (MLV) yang diubah suai PRRSV dan vaksin tidak aktif, terutamanya vaksin tidak aktif autogenous (AIV); bagaimanapun, kedua-dua jenis menghadapi cabaran mereka.
Masa yang lama untuk membangunkan vaksin MLV yang sangat imunogenik bermakna vaksin ini biasanya lebih heterolog berbanding strain PRRSV lazim ladang, dan sementara AIV ditujukan kepada strain lazim ladang ini, sifatnya yang tidak aktif menjadikannya secara amnya kurang imunogenik.
Cabaran ini membawa kepada kekurangan perlindungan terutamanya pada babi muda yang boleh dikaitkan dengan tiga faktor: pertama, kadar mutasi PRRSV yang tinggi mengehadkan perlindungan heterolog, jadi ia mengurangkan keberkesanan vaksin MLV; kedua, kapasiti imunosupresifnya mengehadkan vaksin yang lebih lemah (cth, AIV) dan kelewatan induksi tindak balas imun pelindung menyebabkan babi muda sangat terdedah [17]; dan ketiga, pemahaman kita tentang tindak balas imun terhadap PRRSV, terutamanya dalam babi, adalah terhad. Loving dan Lunney menghasilkan ulasan yang bagus mengenai pemahaman umum tentang tindak balas imun terhadap PRRSV [18,19].

Terutamanya berdasarkan masa lanjutan untuk mewujudkan imuniti yang disebabkan oleh vaksin terhadap PRRSV, pengeluar babi sering memvaksin gilt dan sows untuk membolehkan pemindahan imuniti kepada anak babi. Penyelidikan mengenai vaksinasi ibu menggunakan MLV komersial terhadap jenis PRRSV-1 tidak menghalang vaksinasi 2 atau 3-anak babi berumur seminggu dan ia melindungi sebahagian anak babi daripada cabaran heterolog [20]. Strategi vaksinasi ini juga mendorong PRRSV-1-spesifik IgG, IgA, dan interferon (IFN) - sel merembes dalam kolostrum dan susu induk yang telah divaksin. Sel-sel penghasil IFN ini sangat penting dalam tindak balas anti-virus, termasuk dalam PRRSV [19,21].
Vaksinasi ini juga menyebabkan serum anti-PRRSV IgG, yang dapat dikesan selepas umur enam minggu untuk anak babi yang tidak divaksinasi dan kekal stabil dalam anak babi yang divaksin sebelum cabaran; namun, sel-sel yang merembeskan IFN tidak dapat dibezakan daripada tahap latar belakang dalam anak babi pra-cerai susu [22]. Walaupun penggunaan MLV adalah standard industri, gabungan rejimen vaksinasi MLV prime dan vaksin boost AIV nampaknya menjanjikan untuk mengatasi setiap kelemahan penggunaan MLV dan AIV secara bebas.
Oleh itu, matlamat utama kajian ini adalah untuk menentukan bukan sahaja jika, tetapi juga bagaimana, pemvaksinan ibu dengan dua AIV (rawatan (TRT) 1 campur 2) yang berbeza boleh meningkatkan pemvaksinan MLV standard industri sahaja (TRT 0 ), untuk melindungi anak dengan lebih baik daripada cabaran PRRSV2 awal. Untuk tujuan ini, kami mengkaji tindak balas imun humoral dan pengantaraan sel (CMI) yang disebabkan oleh vaksin dalam gilt ini dan kami mencabar penyapih awal dari gilt dalam setiap kumpulan ini pada usia 2 minggu. Tindak balas imun sistemik dan tempatan anak babi ini diikuti selama 2-4 minggu.
Kami menunjukkan bahawa vaksinasi rangsangan AIV boleh meningkatkan perlindungan anak babi terhadap cabaran PRRSV pada usia 2 minggu dan kami juga mengenal pasti mekanisme imun yang mendasari dan mencirikan tindak balas humoral dan CMI anti-PRRSV dalam babi muda ini. Di samping itu, kami mengesan dua jenis sel baharu dalam babi: (1) CD8 −CCR7− CD4 sel T yang sangat menyumbang kepada pengeluaran IFN dalam lavage bronchoalveolar (BAL)—berpotensi sel CD4 TEMRA, dan (2) sumber utama tindak balas anti-PRRSV terutamanya pada anak babi—sel B penghasil IFN.
2. Bahan-bahan dan cara-cara
2.1. Reka Bentuk Kajian, Haiwan dan Pemprosesan Sampel
Tujuan kajian ini adalah untuk menilai kesan siri vaksinasi PRRSV2 ibu yang berbeza terhadap imuniti perlindungan dalam anak babi yang dipisahkan susu terhadap PRRSV-2. Sebelum kajian, strain PRRSV-2 yang beredar (polimorfisme panjang serpihan sekatan (RFLP), 1-7-4) daripada syarikat daging babi North Carolina telah diasingkan dan disebarkan oleh dua syarikat sains biologi bebas; mereka menghasilkan dua vaksin autogenous yang berbeza. Kedua-dua vaksin mengandungi komponen proprietari yang berbeza tetapi mengandungi ketegangan 1-7-4 PRRRSV-2 yang tidak aktif yang sama. Reka bentuk kajian ini ditunjukkan dalam Rajah 1.

Kedua-dua vaksin diberikan secara intramuskular dalam satu siri empat dos sebelum farrowing: mengikut jadual vaksinasi korporat syarikat babi Carolina Utara, 46 PRRSV-2 sepuhan negatif dalam ladang sow komersial telah divaksin dengan vaksin Ingelvac PRRS MLV (Boehringer Ingelheim Vetmedica GmbH, Jerman) sembilan minggu sebelum pembiakan. Untuk mengekalkan terminologi yang konsisten sepanjang kajian ini, babi betina matang secara seksual yang didaftarkan (di sini ditakrifkan sebagai gilt) akan dirujuk sebagai gilt walaupun selepas ia dibiakkan dan melahirkan anak (biasanya dirujuk sebagai sows). Empat minggu sebelum pembiakan, sampel darah dikumpul daripada semua gilt untuk serum dan kemudian gilt diperuntukkan kepada tiga rawatan: TRT 0 (vaksinasi MLV sahaja); TRT 1 (Vaksinasi MLV ditambah 4 dos vaksin autogenous (1-7-4) tidak aktif 1); atau TRT 2 (vaksinasi MLV ditambah 4 dos vaksin tidak aktif autogen (1-7-4) 2).
Gilts that did not breed were dropped from the study. 3 weeks before farrowing, blood was collected from pregnant gilts for the isolation of serum and peripheral blood mononuclear cells (PBMC). At this point, five gilts remained in both TRT 0 and TRT 2; nine gilts remained in TRT 1. Within these gilts, we selected three gilts per group to provide the piglets for the challenge study. The selected gilts had an adequate litter size (>7) dan titer peneutralan fokus pendarfluor (FFN) serum tertinggi (kriteria imun utama) dan tindak balas IFN-sel T CD4 tertinggi (kriteria imun sekunder) terhadap ketegangan cabaran AIV dalam kumpulan mereka. Untuk TRT 1 tambah 2, titer FFN ini adalah antara 1:4 hingga 1:128. Memandangkan TRT {{10}} tidak mempunyai sebarang titer terhadap strain AIV, kami memilih sepuhan dengan titer anti-MLV tertinggi; titer ini adalah antara 1:16 hingga 1:32. Tindak balas IFN dalam semua gilt terpilih adalah antara 0.09–0.21 peratus daripada jumlah sel T CD4.
Setiap sepuhan ini menyediakan empat anak babi untuk kajian cabaran. Pada usia 2 minggu (= 0 minggu selepas jangkitan, wpi), empat ekor anak babi dengan purata berat sampah terbanyak telah dipilih untuk kajian cabaran dan diangkut ke kemudahan perumahan Tahap Biosekuriti 2 di North Carolina State University ( NCSU) Laboratory Animal Resources (LAR) (Raleigh, North Carolina). Di sini, mereka secara rawak diberikan satu daripada enam pen di dalam bilik yang sama; dua ekor babi setiap rawatan ditempatkan di dalam setiap kandang (satu setiap sepuhan). Secara ringkasnya, terdapat sejumlah 36 anak babi dalam kajian dengan 12 anak babi bagi setiap kumpulan rawatan.
During the study, four piglets died before the end of the study: three piglets from one gilt (TRT 0) died within 30 h of arrival at LAR and were dropped from the study. Additionally, one pig (TRT 2) was euthanized between weeks three and four of the study due to high fever (>106◦ F) dan kekurangan tindak balas terhadap rangsangan fizikal. Babi ini dimasukkan dalam semua analisis hingga minggu ke-3 dan paru-parunya dinilai untuk patologi. Tiada analisis sitometri aliran (FCM) berlaku untuk haiwan ini semasa nekropsi.
Sehari selepas bercerai susu dan tiba di NCSU, semua anak babi telah disuntik secara intranasal dengan 1 × 105.5 PRRSV-2 zarah virus (terikan autogenous 1-7-4) dalam 1 ml 1X phosphate-buffered saline (PBS, Corning, Corning, NY, USA) (500 µL/lubang hidung), dikekalkan dalam kedudukan terlentang selama 30 saat dan kembali ke kandang mereka. Separuh haiwan dikorbankan pada 2 dpi dan baki haiwan dikorbankan pada 4 dpi. Pada nekropsi, BAL, paru-paru, dan nodus limfa trakeobronkial (TrBr LNs) dikumpulkan dan diproses seperti yang diterangkan sebelum ini [13].
Pensampelan berlaku sebelum inokulasi (0 wpi) dan kemudian setiap minggu, seperti yang ditunjukkan dalam Rajah 1. Serum dikumpulkan dalam tiub Serum Separator Tubes (SST) (Becton Dickinson (BD) Biosciences, San Jose, CA, USA) dan darah untuk pengasingan PBMC dikumpulkan dalam tiub heparin (BD Biosciences). Perumahan haiwan adalah oleh panduan Institut Kesihatan Kebangsaan untuk haiwan penyelidikan. Anak babi mempunyai akses tanpa had kepada air, diberi diet peralihan susu susu, kemudian diet biasa dua kali sehari, dan dikekalkan pada suhu 83 ◦F dengan 12-kitaran cahaya/gelap jam. Prosedur percubaan telah diluluskan oleh NC State University Institutional Animal Care and Use Committee (IACUC) ID# 17-166A (29 November 2017).
2.2. Penyebaran Virus, Pentitratan dan Penilaian
Pengasingan virus PRRSV-2 (terikan, 1-7-4) telah disebarkan pada makrofaj alveolar babi (PAM) babi negatif PRRSV dalam RPMI-1640, 1× dengan L-glutamin (Corning, Corning, NY , USA) ditambah dengan 10 peratus serum lembu janin (FBS) (VWR, Radnor, PA, USA) dan 1X antibiotik-antimikotik (Corning) (dirujuk sebagai RPMI-lengkap) selama lebih kurang 30 jam dalam T{11}} flask (Sarstedt, Nümbrecht, Jerman) sehingga kesan sitopatik diperhatikan. Kelalang dicairkan beku satu kali dan supernatan dipusing pada 2200 g pada suhu 4 ◦C selama 10 minit. Untuk menumpukan virus, supernatan kemudiannya dipindahkan ke tiub emparan Nalgene 36 mL (Thermo Fisher Scientific, Rochester, NY, USA) dan dipusing dalam Sorvall 100S Ultracentrifuge (Sorvall, Thermo Fisher Scientific), Newtown, CT, USA) pada 73 ,000 g pada 4 ◦C selama 2 jam.
Supernatan dibuang, dan pelet digantung semula dalam media (RPMI lengkap) dan disimpan dalam 100 µL aliquot pada -80 ◦C. Titer kultur tisu berjangkit dos 50 (TCID50) bagi larutan stok virus telah ditentukan menggunakan PAM seperti yang diterangkan sebelum ini (kaedah Spearman–Karber TCID50 mengikut manual ujian diagnostik OIE [Organisasi Dunia untuk Kesihatan Haiwan, dahulunya Office International des Epizooties (OIE). ), "Bab 2.8.7 Sindrom Pembiakan dan Pernafasan Porcine", Terr. Man., No. Mei 2015, 2015].
2.3. Viremia
Serum terpencil dianalisis oleh makmal diagnostik syarikat daging babi Carolina Utara menggunakan Reverse-Transcription quantitative polymerase chain reaction (RT qPCR) dengan kit 5X MagMAX pathogen RNA/DNA (Thermo Fisher Scientific) dan VetMAX PRRSV qPCR kit (Thermo Fisher Scientific). Serum gilt yang divaksin adalah PRRSV-negatif (qPCR) pada farrowing seperti yang ditentukan oleh Makmal Diagnostik Veterinar Universiti Iowa (ISU VDL, Ames, IA, Amerika Syarikat). Nilai ∆Ct dikira dengan menolak nilai Ct sampel daripada nilai Ct yang dianggap sebagai PRRSV-negatif (Ctneg=37) untuk PRRSV: ∆Ct=37 − Ctx.

2.4. Meneutralkan Pengesahan Antibodi dan Penentuan Sampel Positif
Sampel serum daripada sepuhan dan anak babi telah dihantar ke Makmal Penyelidikan dan Diagnostik Haiwan South Dakota State University (Brookings, SD) yang melengkapkan penentuan antibodi peneutralan PRRSV-2 (NA) menggunakan FFN dan 1-7-4 ketegangan inokulasi. Keputusan positif ialah pencairan serum tertinggi dengan pengurangan 90 peratus atau lebih tinggi dalam bilangan unit pembentuk fokus pendarfluor [23].
2.5. Prosedur Nekropsi, Pemarkahan, dan Pengasingan Sel Tisu
Pada nekropsi (2 atau 4 wpi), haiwan dikorbankan menggunakan suntikan intravena maut Euthasol (Covetrus, MW, 390 mg/mL pentobarbital, 50 mg phenytoin/mL). Kemudian, paru-paru, timus, dan TrBr LNs dituai.
Untuk paru-paru, gambar dorsal dan ventral diambil; paru-paru disiram dengan 1 × PBS untuk mengumpul lavage alveolar bronkial (BAL) dan lima jumlah sampel diambil untuk histologi: masing-masing satu dari lobus ekor kanan dan kiri, lobus tengah kanan dan kiri dan kemudian satu dari lobus aksesori. Sampel histologi telah ditetapkan dalam fiksatif Formaldehid/Zn (Electron Microscopy Sciences, Hatfield, PA) selama 24 jam, dipindahkan kepada 70 peratus etanol, dan diwarnai dengan hematoxylin dan eosin (H&E). Slaid bernoda (histologi) dan foto paru-paru (patologi kasar) telah dihantar ke ISU VDL dan dijaringkan oleh pakar patologi diagnostik veterinar yang buta terhadap rawatan dan tarikh nekropsi; pemarkahan lesi paru-paru dan radang paru-paru interstisial dilakukan seperti yang diterangkan sebelum ini [24].
Pandangan dorsal dan ventral foto paru-paru dinilai untuk peratusan paru-paru yang terjejas dengan radang paru-paru. Secara khusus, peratusan radang paru-paru dianggarkan secara visual untuk setiap lobus paru-paru, dan jumlah peratusan untuk keseluruhan paru-paru dikira berdasarkan perkadaran wajaran setiap lobus berbanding dengan jumlah isipadu paru-paru. Setiap daripada empat cuping cranioventral mewakili 10 peratus, cuping aksesori 5 peratus, dan setiap satu daripada dua cuping ekor mewakili 27.5 peratus daripada jumlah paru-paru.
Bahagian histopatologi paru-paru telah diperiksa secara membuta tuli untuk lesi mikroskopik dan setiap lobus diberi skor anggaran berdasarkan keterukan radang paru-paru interstisial seperti berikut: 0=tiada lesi mikroskopik; 1=radang paru-paru celahan minimum; 2=radang paru-paru celahan ringan; 3=radang paru-paru interstisial sederhana; 4=radang paru-paru interstisial yang banyak; 5=radang paru-paru interstisial multifokal yang teruk; 6=radang paru-paru interstisial yang teruk dan meresap. Untuk semua tisu yang dikumpul (paru-paru, timus, dan TrBr LNs), tisu itu dipotong menjadi kepingan kecil dan ditekan melalui penapis longkang bulat keluli tahan karat (Grainger, Lake Forest, IL, USA) ke dalam tiub 50 ml dengan PBS sejuk ais untuk mencairkan penggantungan sel tunggal. Gumpalan berserabut ditapis dengan penapis 40 µm (BD Biosciences, San Jose, CA, Amerika Syarikat).
2.6. Pengasingan Darah Periferal, Rangsangan Viral dan Pewarnaan/Analisis IFN- FCM
Pengasingan PBMC dilakukan menggunakan sentrifugasi ketumpatan Ficoll-Paque (GE Healthcare, Uppsala, Sweden) dan tiub SepMate-50 ml (STEMCELL Technologies, Vancouver, BC, Kanada) mengikut protokol pengeluar. Kiraan sel penggantungan PBMC dan sel tunggal telah dilengkapkan pada sistem pengiraan sel CASY (Schärfe System, sekarang: Roche Innovatis AG, Bielefeld, Jerman). Untuk ujian pengeluaran IFN, 5 × 10⁵ PBMC dan limfosit dari paru-paru, dan TrBr LNs disalut dalam lapan replika dalam 96-plat bawah telaga bulat (Corning) dalam 100 µl RPMI-lengkap dan berehat semalaman dalam inkubator pada 37◦ C dan 5 peratus CO2. Pagi berikutnya 100 µL RPMI-lengkap yang mengandungi terikan PRRSV 1-7-4 (Multiplicity of Infection, MOI=0.1) telah ditambahkan pada setiap telaga; plat dikembalikan ke inkubator selama 24 jam rangsangan virus.
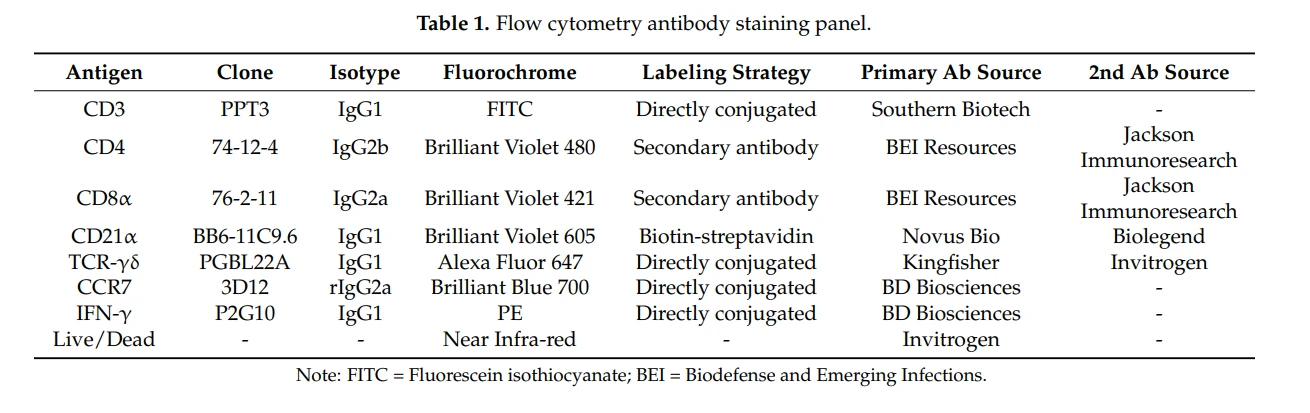
Untuk 4 jam terakhir kultur, monensin (5 µg/mL, Alfa Aesar, Haverhill, MA, USA) telah ditambah untuk menyekat pembebasan IFN daripada sel. Setelah selesai pengeraman 24 jam, replika dikumpulkan dan diwarnakan seperti yang dinyatakan dalam Jadual 1; secara purata 276,756 limfosit hidup tunggal (SLL) telah direkodkan pada Cytoflex menggunakan perisian CytExpert (Beckman Coulter, Brea, CA, Amerika Syarikat). Analisis data dilakukan dengan FlowJo versi 10.6.1 (FLOWJO LLC). Hierarki gating untuk analisis tindak balas IFN- ditunjukkan dalam Rajah 4 dan 5 untuk PBMC dan dalam Rajah Tambahan S1 dan Rajah 7 untuk BAL, tisu paru-paru, dan TrBr LNs.
2.7. Analisis statistik
Analisis statistik dilakukan menggunakan Graphpad Prism 8 (Perisian Graphpad, San Diego, CA, Amerika Syarikat). Data dengan set data penuh dianalisis sama ada dua hala (sepanjang kajian) atau sehala (pada nekropsi) ANOVA. Data dengan titik data yang hilang (terutamanya disebabkan oleh nekropsi 50 peratus babi pada 2 dpi) telah dianalisis oleh model kesan campuran (Kemungkinan maksimum terhad, REML). Semua perbandingan berbilang telah dilakukan dengan ujian perbandingan berbilang Dunnett. Ilustrasi data dilakukan menggunakan plot biola yang menunjukkan taburan, titik individu, median (seperti yang berkenaan, garis hitam putus-putus) dan selang ke-25/75 (sebagai garis berwarna yang berkenaan). Analisis korelasi antara tahap nAb sepuhan dan babi dilakukan menggunakan pekali korelasi Pearson dan selang keyakinan 95 peratus dua ekor.
3. Keputusan
3.1. Reka Bentuk Kajian dan Keberkesanan Vaksin—Tanda Klinikal, Viremia, Pertambahan Berat Badan dan Patologi Paru-paru
Kajian telah dijalankan seperti yang digambarkan dalam Rajah 1. Selepas inokulasi PRRSV, babi menunjukkan simptom PRRSV ringan bermula dalam tempoh 3-4 hari selepas jangkitan—demam [terutamanya pada 1 wpi, dns], lesu, mengurangkan penggunaan makanan, batuk/bersin ringan. Tiada perbezaan ketara diperhatikan untuk simptom ini dan ia berterusan pada tahap yang berbeza-beza sehingga nekropsi. Rajah 2 menggambarkan viremia, pertambahan berat badan mingguan serta markah kasar dan histopatologi.
Seperti yang ditunjukkan dalam Rajah 2A, semua babi adalah PRRSV-2 negatif semasa bercerai susu dan inokulasi intranasal dengan PRRSV-2 menyebabkan viremia yang memuncak pada 2 wpi. Walaupun tiada perbezaan dalam viremia antara TRT 0 dan TRT 2, TRT 1 mempunyai viremia yang jauh lebih rendah dalam dua minggu pertama berbanding kumpulan kawalan TRT 0. Pertambahan berat badan babi dalam semua kumpulan adalah hampir sama untuk tiga minggu pertama; namun, pada akhir kajian—dan dibandingkan dengan TRT 0—TRT 2 dan TRT 1 mempunyai pertambahan berat mingguan yang jauh lebih tinggi—Rajah 2B. Paling ketara, sementara patologi paru-paru secara amnya diselesaikan dalam jangkitan PRRSV dan oleh itu serupa antara kumpulan pada 4 dpi (dns), kedua-dua vaksin AIV ibu, jadi TRT 1 tambah 2, mengurangkan dengan ketara patologi paru-paru pada 2 wpi: kedua-duanya menurunkan tahap peratusan lesi makroskopik dan/atau radang paru-paru interstisial (Rajah 2C, D). Kelaziman lesi paru-paru makroskopik dalam paru-paru daripada TRT 0 adalah antara 20–70 peratus ; Sebaliknya, kebanyakan babi dalam TRT 1 tambah 2 mempunyai prevalens lesi paru-paru di bawah 20 peratus —Rajah 2C. Begitu juga, sementara skor histopatologi median untuk radang paru-paru interstisial dalam paru-paru dari TRT 0 babi adalah tiga, ia adalah 1.8 untuk TRT 1 dan 1.2 untuk TRT 2, masing-masing. Berbanding dengan TRT 0, ini menunjukkan kecenderungan ke arah kepentingan (p=0.07) dan penurunan ketara dalam histopatologi paru-paru dalam babi daripada gilt yang divaksinkan AIV—Rajah 2D. Data ini menunjukkan bahawa vaksinasi AIV boleh mengurangkan viremia dan patologi paru-paru dengan ketara, selain itu, ia juga menunjukkan bahawa vaksinasi AIV ibu terhadap PRRSV-2 boleh meningkatkan imuniti 2-anak babi berumur seminggu.

3.2. Induksi Antibodi Meneutralkan Ibu dan Pemindahannya kepada Anak Babi
Induksi tindak balas imun humoral dalam gilt dan anak mereka dianalisis dengan menentukan titer NA FFN (Rajah 3).

Pemvaksinan semua kumpulan dengan titer NA yang disebabkan oleh MLV dalam sepuhan antara empat dan 64 tanpa perbezaan yang ketara antara tiga kumpulan (dns). Sebaliknya, walaupun vaksinasi MLV sahaja (TRT 0) tidak termasuk NAs terhadap strain 1-7-4 heterolog, kedua-dua vaksin rangsangan AIV menyebabkan titer NA sehingga 1:16 (untuk TRT 2) dan juga 1 :128 (untuk TRT 1)—Rajah 3A.

NA serum ini dipindahkan secara ibu kepada anak babi (Rajah 3B): Manakala anak babi TRT 0 tidak menunjukkan titer NA pada 0 wpi, anak babi TRT 1 dan TRT 2 memiliki NA serum untuk meneran 1-7-4 sebelum ini jangkitan yang berkorelasi secara langsung dengan tahap NA ibu (Rajah 3C, r=0.886, p < 0.0001). Titer NA ini menurun dalam tempoh dua minggu pertama, sebelum menstabilkan sebanyak 4 wpi. Namun, berbanding dengan TRT 0, anak babi daripada gilt yang divaksinkan AIV (TRT 1 tambah 2) mempunyai titer NA serum yang jauh lebih tinggi sebelum cabaran dan titer yang meningkat ini berlangsung sehingga 2-3 wpi, jadi sehingga umur 4-5 minggu—Rajah 3B.
For more information:1950477648nn@gmail.com