ZBP1-Mediated Necroptosis: Mekanisme Dan Implikasi Terapeutik
Dec 20, 2023
Abstrak:Kematian sel adalah proses patofisiologi asas dalam penyakit manusia. Penemuan nekroptosis, satu bentuk nekrosis terkawal yang disebabkan oleh pengaktifan reseptor kematian dan pembentukan nekrosom, mewakili satu kejayaan besar dalam bidang kematian sel dalam dekad yang lalu. Protein pengikat Z-DNA (ZBP1) ialah protein penggerak interferon (IFN), yang pada mulanya dilaporkan sebagai sensor DNA (dsDNA) bertali dua, yang mendorong tindak balas keradangan semula jadi. Baru-baru ini, ZBP1 telah dikenal pasti sebagai sensor penting nekroptosis semasa jangkitan virus. Ia menghubungkan asid nukleik virus dan protein kinase 3 (RIPK3) yang berinteraksi dengan reseptor melalui dua domain dan mendorong pembentukan nekrosom. Kajian terbaru juga melaporkan bahawa ZBP1 mendorong nekroptosis dalam jangkitan bukan virus dan mengantara transduksi isyarat nekrotik dengan mekanisme unik. Kajian ini menyerlahkan penemuan ZBP1 dan penemuan novelnya dalam nekroptosis dan memberikan gambaran tentang peranan kritikalnya dalam crosstalk antara pelbagai jenis kematian sel, yang mungkin mewakili pilihan terapeutik baru.

sistem imun yang meningkatkan tumbuhan cistanche
Kata kunci: ZBP1; PANoptosis; pyroptosis; apoptosis; nekroptosis
1. Pengenalan
Kematian sel adalah proses patofisiologi asas dalam pelbagai penyakit. Mengikut jenis proses kematian, kematian sel boleh dibahagikan kepada dua kumpulan utama: kematian sel terprogram (PCD), proses kematian selular yang tepat dan dikawal secara genetik, dan bukan PCD, juga dipanggil nekrosis. Dalam dekad yang lalu, PCD telah ditunjukkan untuk memainkan peranan penting dalam perkembangan penyakit manusia dan tindak balas imun [1]. Apoptosis ialah laluan kematian sel terprogram pertama yang dikenal pasti [2,3]. Kematian sel ini terutamanya berlaku dalam proses pembangunan dan penuaan, manakala ia boleh berlaku di bawah pelbagai rangsangan patologi dalam pertahanan imun [4]. Apabila apoptosis berlaku, ia menunjukkan pengecutan sel, pemeluwapan kromatin, pembentukan apoptosom, dan fagositosis [5]. Pelaksanaan laluan ini dianggap berkaitan dengan keluarga protein Bcl-2 dan keluarga protease asid aspartik Cysteinyl (Caspase) [6,7].
Nekrosis, berbanding apoptosis, merujuk kepada kematian pasif apabila sel cedera, yang dicirikan oleh pembengkakan sitoplasma, pecah membran, dan pembebasan kandungan intraselular [8]. Necroptosis ialah satu bentuk nekrosis terkawal yang dikawal oleh kinase protein berinteraksi reseptor (RIP) (RIPKs) [9]. Walau bagaimanapun, didapati bahawa laluan faktor nekrosis tumor (TNF), yang mendorong apoptosis, juga boleh menjadi pengantara kejadian nekroptosis dalam keadaan tertentu [10]. Di samping itu, laluan PCD lain juga boleh berlaku bersama-sama dengan nekroptosis [11].

cistanche tubulosa-meningkatkan sistem imun
Klik di sini untuk melihat produk Cistanche Enhance Immunity
【Minta lebih lanjut】 E-mel:cindy.xue@wecistanche.com / Whats App: 0086 18599088692 / Wechat: 18599088692
Pyroptosis ialah sejenis PCD baharu yang ditemui dalam beberapa tahun kebelakangan ini, iaitu sejenis kematian sel radang yang tipikal. Ia kebanyakannya berlaku dalam penyakit berjangkit [12]. Secara morfologi, pembentukan pori-pori membran, pecahnya membran plasma, dan pelepasan kandungan sel menyebabkan tindak balas keradangan yang kuat dalam pyroptosis [13]. Inflammasom memainkan peranan utama dalam proses pyroptosis, yang mengaktifkan ahli keluarga Caspase untuk menggalakkan pengaktifan sitokin pro-radang IL dan protein fermin gas. Dalam tahun-tahun kebelakangan ini, didapati terdapat perbincangan silang antara pelbagai laluan PCD, dan penemuan faktor utama yang boleh mengawal selia secara meluas proses ini ialah titik panas penyelidikan. ZBP1, iaitu protein pengikat Z-DNA 1, pada asalnya dipanggil DLM-1, iaitu nama gen yang dikenal pasti pada asalnya. Ia adalah sejenis protein yang berkaitan dengan tumor yang sangat diinduksi oleh LFN- atau lipopolysaccharides (LPS), dan kajian itu mencadangkan bahawa ZBP1 memainkan peranan dalam tindak balas tuan rumah dalam neoplasia [14]. Kajian seterusnya melaporkan bahawa terminal N DLM-1 mengandungi domain pengikat Z-DNA (ZBD) yang sama dengan enzim adenosin deaminase penyunting RNA yang bertindak pada RNA1 (ADAR1), mencadangkan bahawa DLM-1 boleh bertindak sebagai sensor DNA intraselular [15]. Ekspresi ZBP1 sangat didorong oleh IFN lain dan secara selektif meningkatkan ekspresi jenis IFN yang dimediasi DNA dan gen berkaitan imun semula jadi yang lain [16]. Sehubungan itu, ia telah ditetapkan sebagai pengaktif yang bergantung kepada DNA bagi faktor pengawalseliaan IFN (DAI), menunjukkan bahawa ZBP1 memainkan peranan penting dalam pengaktifan pengantara DNA bagi tindak balas imun semula jadi. Ia menghubungkan corak molekul berkaitan patogen (PAMP) dan corak molekul berkaitan kerosakan (DAMP) dengan transduksi isyarat pro-radang intraselular [17]. Dari segi nekroptosis, kajian awal memberi tumpuan kepada jangkitan virus, yang menunjukkan bahawa ZBP1, sebagai reseptor RNA virus (vRNA), mencetuskan laluan kematian sel terutamanya melalui nekroptosis dan tindak balas keradangan [18]. Selain itu, fungsi penting ZBP1 juga telah disahkan dalam penyakit manusia, termasuk jangkitan SARS-CoV-2 [19], kanser [20] dan keradangan kulit [21].
2. ZBP1, Sensor Semula Jadi
2.1. Struktur ZBP1
ZBP1 mengandungi dua ZBD terminal N (Z 1 dan Z 2), sekurang-kurangnya dua domain motif interaksi homotaip RIP (RHIM1 dan RHIM2), dan satu domain isyarat terminal C (SD) (Rajah 1) [22]. Domain Z 2 memainkan peranan penting dalam mengesan Z-DNA dan Z-RNA. Kajian yang berkaitan menunjukkan bahawa mutasi khusus di rantau ini berkesan menghalang pengiktirafan ZBP1 dengan vRNA atau Z-NA endogen, dengan itu menghalang kematian dan keradangan sel berikutnya [23]. Domain ini juga menjadi sasaran banyak perencat ZBP1, termasuk protein E3 virus vaccinia (VACV) dan ADAR1 [24,25]. Domain RHIM mengantara kematian sel. ZBP1 bergabung dengan penerima berinteraksi protein kinase 3 (RIPK3) melalui domain RHIM [26]. ZBP1 menggalakkan autofosforilasi RIPK3 dan mendorong fosforilasi campuran linear kinase domain-like (MLKL), pelaksana nekroptosis hiliran, untuk mendorong nekroptosis. Dengan kehadiran RIPK1, protein dengan domain RHIM yang sama, pengikatan ZBP1 ke RIPK3 dihalang oleh persaingan RIPK1 [27]. Protein Murine cytomegalovirus (MCMV) M45, yang merupakan protein yang disucikan bersama dalam virus dan sistem pertahanan imun perumah, juga membawa domain RHIM terminal-N. Ia menghalang nekroptosis dengan mensimulasikan interaksi antara RIPK1 dan RIPK3 untuk membentuk struktur amiloid heterogen [28]. Domain SD ZBP1 merekrut kinase pengikat TANK-1 (TBK1) dan faktor kawal selia IFN 3 (IRF3) untuk mengaktifkan sintesis IFN jenis I dan tindak balas keradangan lain [29]. Walau bagaimanapun, paksi ZBP1- IRF3 juga menjadi pengantara percambahan sel mieloma [30].
Sebagai sensor Z-NA, ZBP1 terutamanya bergantung pada domain Z untuk mengenal pasti ligan. Di bahagian tengah ZBP1, terdapat sekurang-kurangnya dua domain RHIM, yang boleh mengikat dengan protein lain yang mengandungi RHIM (seperti RIPK1, RIPK3 dan TRIF) dan mengantara transduksi isyarat hiliran. Kedua-dua domain khas ini juga boleh menjadi sasaran untuk perencatan ZBP1. Contohnya, protein M45 MCMV boleh menghalang kematian sel pengantara ZBP1-dengan domain RHIMnya. Walaupun ADAR1-P150 ialah perencat dengan ZBP1 oleh domain Z yang menghalang pengaktifan ZBP1, ia mempunyai domain Z tambahan yang unik, berbanding dengan subjenis ADAR1-P110 yang tidak sah. Z 1, Z 2, Z- , dan Z- ialah domain pengikat Z-DNA. SD: Domain isyarat; KD: domain Kinase; ID: Domain perantaraan; DD: Domain kematian; TIR: Domain penerima tol/interleukin{20}}; RNR-LIKE: domain seperti Ribonucleotide reductase.
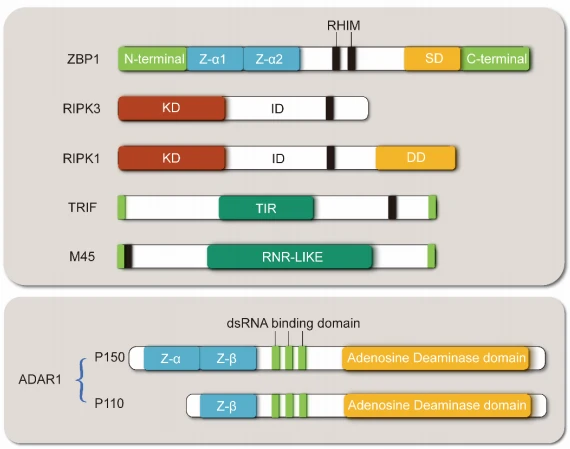
Rajah 1. Gambar rajah struktur ZBP1 dan protein berinteraksinya.
2.2. ZBP1 Mengikat Z-NA Viral untuk Mengantara Tindak Balas Radang dan Tindak Balas Pertahanan Hos
Molekul yang paling berkaitan dengan ZBP1 sudah pasti IFN. Ekspresi ZBP1 diinduksi oleh IFN dan juga mendorong tindak balas IFN [31]. Persatuan ini dengan IFN menunjukkan bahawa ZBP1 memainkan peranan yang sangat diperlukan dalam tindak balas keradangan dan pertahanan tuan rumah [32]. Oleh kerana ZBP1 mengandungi ZBD, kajian menyiasat jenis Z-DNA yang diikatnya dan tindak balas imun yang disebabkan [33]. Kajian awal melaporkan bahawa kedua-dua B-DNA dan Z-DNA berasal daripada pelbagai sumber (DNA sintetik atau DNA asal bakteria, virus, atau mamalia) mendorong ekspresi kuat ZBP1 dan IRF untuk mengantara ekspresi IFN dan tindak balas antivirus [34]. Pengiktirafan Z-RNA oleh ZBP1 virus influenza (IAV) mengakibatkan nekroptosis [35]. Di sini, ZBP1 bertindak sebagai sensor semula jadi IAV yang mengiktiraf Z-RNA dalam kompleks ribonucleoprotein virus (vRNP) untuk mendorong nekroptosis untuk menahan jangkitan virus. ZBP1 juga menginduksi interleukin-1 (IL-1 ) dalam IAV melalui domain pyrin keluarga reseptor (NLR) NOD yang mengandungi domain 3(NLRP3) dan merekrut neutrofil pulmonari, mengakibatkan keradangan [36]. Kajian lanjut membuktikan bahawa gen virus yang rosak (DVG) IAV dan orthomyxovirus lain menghasilkan Z-DNA, yang dirasai oleh ZBP1, dan menyebabkan kematian sel dan tindak balas keradangan [37]. Selain itu, ZBP1 mengesan Z-NA endogen dalam tikus untuk mendorong kematian sel dan keradangan kulit, terutamanya dalam kes mutasi RIPK1 dan Caspase-8 [38]. ZBP1 bertindak sebagai reseptor DNA sitoplasma dalam banyak jenis jangkitan patogen, termasuk jangkitan Toxoplasma gond ii [39,40], Kulat [41], dan Yersinia pseudotuberculosis [42]. Walau bagaimanapun, masih perlu disahkan sama ada Z-NA boleh dihasilkan dalam patogen ini dan virus lain untuk penderiaan ZBP1.
2.3. ZBP1 Mengesan Z-NA Endogen dan Mengakibatkan Kematian Sel
Untuk masa yang lama, kajian telah menumpukan pada peranan ZBP1 dalam mengesan asid nukleik virus dalam kematian sel yang disebabkan oleh virus, tetapi sama ada ZBP1-kematian sel pengantara dalam jangkitan bukan virus boleh mengesan ligan endogen masih perlu diterokai [ 43]. Jonathan et al. melaporkan pengiktirafan asid nukleik endogen dalam sel tidak berjangkit dengan ekspresi tinggi ZBP1 [44]. Selanjutnya, analisis silang silang dan immunoprecipitation (PAR-CLIP) yang dipertingkatkan ribonucleoside fotoaktif menunjukkan bahawa ZBP1 mengikat RNA dan bukannya DNA, dan asid nukleik ini mungkin berada dalam konformasi Z. Dalam kajian ini, ZBP1 telah dipengaruhi oleh Caspase-8 untuk mendorong kematian sel, yang mungkin dimediasi melalui RIPK3, yang jelas berbeza daripada jangkitan virus.
Kemajuan baharu telah dibuat pada tahun 2020 [38]. Pasukan mendapati bahawa pengiktirafan ZBP1 terhadap Z-NA endogen mencetuskan keradangan dan kematian sel dalam RIPK1-tikus yang kekurangan, yang membawa kepada keradangan kulit. Selain itu, ZBP1 juga boleh mengesan ligan endogen untuk mencetuskan kematian sel yang mengakibatkan kolitis pada tikus dengan menghalang transduksi isyarat FADD-Caspae-8 [45]. ZBP1 mengikat kepada dsRNA endogen melalui domain Z, yang kemungkinan besar dimediasi oleh retroelements endogen (ERE). Dalam ERE, B2 dan Alu SINEs mempunyai potensi terbesar untuk membentuk dsRNA [46]. Ia secara khusus dinyatakan dalam epidermis dan membentuk dsRNA untuk mendorong kematian sel dan keradangan kulit dalam RIPK{12}}tikus yang kekurangan [21]. ADAR1 membawa domain Z, yang boleh mengedit dsRNA yang dihasilkan oleh ERE, menunjukkan bahawa ADAR1 mungkin memainkan peranan penting dalam pengantaraan pengiktirafan asid nukleik endogen oleh ZBP1. Dalam beberapa tahun kebelakangan ini, beberapa kajian melaporkan kesan pengawalseliaan ADAR1 pada ZBP1-mengantarakan kematian dan keradangan sel dan mengenal pasti ADAR1 sebagai pengawal selia negatif ZBP1 [47]. ADAR1 boleh dikelaskan kepada dua subtipe, P110 dan P150. P150 boleh diinduksi oleh IFN dan memainkan peranan utama dalam mengawal selia ZBP1 (Rajah 2) [48]. Berbanding dengan P110, P150 mengandungi domain Z tambahan dan isyarat keluaran nuklear (NESs), yang menentukan keupayaannya untuk translokasi ke dalam sitoplasma dan berinteraksi dengan ZBP1. Peraturan negatif ADAR1 pada ZBP1 berlaku melalui perencatan kematian sel yang bergantung kepada Z-RNA- dan ZBP{36}}dengan menghalang pengumpulan transkrip mRNA, yang membentuk Z-RNA [49]. Walau bagaimanapun, ia dikaitkan secara langsung dengan interaksi domain ZBP1 Z, yang menghalang pengiktirafan Z-NA endogen. Dalam ADAR1-tikus yang kekurangan, ZBP1 mengantara RIPK3-kematian sel bergantung dan tindak balas IFN jenis I patogen yang bergantung kepada MAVS [50]. Selanjutnya, apoptosis yang bergantung kepada Caspase-8-juga menyumbang kepada penyakit di bawah kekurangan ADAR1, yang disebabkan oleh gabungan konstitutif ZBP1 dan RIPK1 [51]. Caspase-8 juga menghalang laluan keradangan faktor-kappaB (NF-κB) pengantaraan ZBP1-nuklear. Siasatan lanjut mencadangkan bahawa Alu dsRNA endogen mungkin ligan yang diiktiraf oleh ZBP1 dalam kes kekurangan ADAR1 [52]. Walau bagaimanapun, kajian berkaitan juga mengenal pasti dan mengesahkan molekul kecil, CBL0137, yang menggalakkan penggunaan konformasi Z-DNA oleh jujukan genom [51]. Oleh itu, CBL0137 menjana sejumlah besar Z-DNA endogen dan mendorong kematian sel yang bergantung kepada ZBP{63}} dalam fibroblas stroma tumor semasa perencatan ADAR1.

manfaat cistanche untuk lelaki-menguatkan sistem imun
Kedua-dua ADAR1 dan ZBP1 didorong oleh IFN, tetapi ADAR1-P150, salah satu subjenisnya, boleh menghalang fungsi ZBP1. ADAR1-P150 melemahkan sintesis Z-RNA endogen dalam nukleus dan menghalang pengecaman Z-NA ZBP1 dengan bergabung dengannya dalam sitoplasma. Ubat molekul kecil CBL0137 menggalakkan sintesis Z-DNA endogen dalam nukleus dan memainkan peranan penting dalam mendorong laluan isyarat pengantaraan ZBP1-. Apabila ADAR1 rosak, ZBP1 terutamanya menyebabkan dua bentuk kematian sel: nekroptosis, dan apoptosis, yang bergantung pada pengiktirafan domain Z 2. Necroptosis disebabkan terutamanya oleh pengaktifan pengantaraan ZBP1-paksi isyarat RIPK3-MLKL, manakala apoptosis disebabkan oleh gabungan konstitutif ZBP1 dan RIPK1 untuk mendorong pengaktifan Caspase-8. Caspase-8 juga boleh menghalang kesan ZBP1 dan RIPK3 untuk menghalang nekroptosis. Di samping itu, ZBP1 juga menggalakkan tindak balas IFN jenis I dengan mendorong laluan isyarat antiviral (MAVS) mitokondria.

Rajah 2. ADAR1-P150 menghalang ZBP1-kematian dan keradangan sel yang diprogramkan
3. ZBP1 Mengantara Necroptosis
Dalam kajian terdahulu, nekrosis dianggap sebagai bentuk kematian sel yang pasif dan tidak terkawal [3,53,54]. Walau bagaimanapun, dalam beberapa tahun kebelakangan ini, satu bentuk khas kematian sel terprogram, iaitu nekroptosis, telah dilaporkan [55-58]. Ia dicirikan oleh kematian nekrotik dan juga dikawal oleh molekul yang berkaitan, termasuk RIPK1/3 [59-62]. Kematian sel yang diprogramkan ini boleh disebabkan oleh pelbagai faktor, termasuk TNF, IFN, LPS, dsRNA, kerosakan DNA, dan tekanan retikulum endoplasma [63,64]. Necroptosis disebabkan oleh gabungan ligan yang berbeza dengan reseptor domain kematian keluarga TNF, reseptor pengecaman corak, dan sensor virus melalui laluan hiliran yang bebas dan bersatu [65-67]. Necroptosis yang disebabkan oleh TNF adalah laluan yang paling banyak dikaji dan klasik, yang dimediasi oleh RIPK1, RIPK3, dan MLKL [68-70]. TNF mengikat kepada reseptor yang sepadan (TNFR1), dan domain kematiannya TRADD mengikat dan mengaktifkan RIPK1. Dengan ketiadaan Caspase-8, FADD selanjutnya direkrut untuk membentuk kompleks, yang bertindak pada RIPK3 untuk mengaktifkan fosforilasi dan oligomerisasi [71–74]. Akhirnya, nekrosom yang terdiri daripada RIPK3 mengaktifkan protein MLKL. MLKL diaktifkan oleh fosforilasi di tapak yang berbeza dalam spesies yang berbeza [75-77]. MLKL manusia difosforilasi pada Thr357, Ser358, Ser345, dan Ser347, manakala MLKL tetikus difosforilasi pada Thr349 dan Ser352 [78]. Sebagai pelaksana, MLKL mengubah bentuknya selepas pengaktifan melalui fosforilasi RIPK3. Ia melepaskan empat domain berkas heliks, diikuti dengan translokasi dari matriks sitoplasma ke membran sel, yang membawa kepada perpecahan struktur membran plasma [64,79,80]. Komponen selular yang bocor mungkin terikat pada sel asal dan di sekelilingnya sebagai ligan untuk mendorong nekroptosis lagi. ZBP1 adalah pengawal selia utama salah satu laluan induksi nekroptosis, yang terutamanya disebabkan oleh jangkitan virus [81]. Ia dikaitkan dengan induksi dan pelaksanaan nekroptosis. Perbezaan terbesar antara laluan ini dan laluan klasik terletak pada peranan yang dimainkan oleh RIPK1, yang sering wujud sebagai pengawal selia negatif nekroptosis dalam laluan pengantaraan ZBP1-[21,27,82]. RIPK3 dan MLKL mengantara transduksi isyarat pada peringkat akhir nekroptosis dengan mengintegrasikan isyarat yang berbeza untuk menentukan tahap nekrosis.
3.1. ZBP1 Berinteraksi dengan Molekul Utama dalam Transduksi Isyarat Necroptosis melalui Domain RHIM
Transduksi isyarat nekroptosis melibatkan empat protein yang membawa domain RHIM, iaitu ZBP1, RIPK1, RIPK3, dan TRIF [83]. Peranan penyesuai yang mengandungi domain TIR mendorong interferon- (TRIF) adalah serupa dengan ZBP1 dalam nekroptosis. Sebagai penyesuai penerima seperti Toll 3/4 (TLR3/4), ia berinteraksi dengan RIPK3 untuk mengantara nekroptosis [84]. ZBP1 dikaitkan dengan laluan permulaan lain, yang mendorong nekroptosis dengan menggabungkan domain RHIM dengan RIPK3. RIPK1 juga mengawal proses ini melalui domain RHIM.
3.1.1. ZBP1 Bergabung dengan RIPK3 semasa Pembentukan Necrosome
Nekrosom pertama kali dicadangkan dalam laluan nekroptosis biasa yang disebabkan oleh TNF [85]. Ia ialah kompleks amiloid sitoplasma, terutamanya terdiri daripada RIPK1, RIPK3 dan MLKL yang diaktifkan, yang mencetuskan nekroptosis [86]. Fungsi teras nekrosom adalah untuk menggalakkan pengambilan dan fosforilasi RIPK3 dan MLKL. Dalam laluan TNF, RIPK1 menggalakkan autofosforilasi dan pengaktifan RIPK3. Semasa dalam ZBP1-nekroptosis pengantara, ZBP1 mendorong autofosforilasi RIPK3 (Rajah 3). Interaksi antara ZBP1 dan RIPK3 juga mencukupi untuk menjana satu lagi jenis nekrosom dan mengaktifkan MLKL. RIPK1 memainkan peranan yang bertentangan dalam laluan ini dan menghalang nekroptosis. Semasa pembangunan tetikus, pemadaman RIPK1 mendorong ZBP1-pengantara nekroptosis dan apoptosis, mengakibatkan kematian perinatal [27,82,87]. Kehilangan keratinosit RIPK1 mencetuskan keradangan kulit dan nekroptosis [21]. RIPK1 tidak mempunyai aktiviti kinase tanpa induksi TNF dan faktor lain. Walau bagaimanapun, ia boleh mengikat RIPK3 melalui domain RHIM, dan ia tidak boleh menggalakkan fosforilasi RIPK3. Dalam kes ini, protein lain yang mengaktifkan nekroptosis, seperti TRIF dan ZBP1, tidak boleh mengikat RIPK3, menunjukkan bahawa RIPK1 menghalang ZBP1-nekroptosis pengantara.

cistanche tubulosa-meningkatkan sistem imun
Apabila virus atau Z-NA endogen terkumpul, ZBP1 memainkan peranan penting dalam induksi nekroptosis. Selepas domain Z 2nya merasakan Z-NA, ZBP1 boleh memfosforilasi dan mengaktifkan RIPK3 dengan mengikatnya secara langsung, yang bergantung pada domain RHIM mereka. RIPK3 yang diaktifkan secara spontan oligomerisasi untuk membentuk mikrosom dan mendorong pengaktifan dan oligomerisasi MLKL untuk menjalankan nekroptosis. Oleh itu, fungsi bergantung pada domain ini dihalang oleh protein lain dengan domain RHIM, termasuk protein RIPK1 dan M45 dalam MCMV. Di samping itu, LPS yang dihasilkan dalam jangkitan patogen lain juga boleh mengenali reseptor TLR4 pada membran sel untuk mendorong pengaktifan RIPK3 untuk membentuk mikrosom, dan hubungan antara reseptor ini dan RIPK3 juga direalisasikan oleh protein dengan domain RHIM, TRIF. Satu lagi laluan klasik nekroptosis dimediasi oleh TNF, yang boleh mengenali isyarat patogen yang lebih banyak. TNF yang berlebihan mengikat TNFR, yang boleh bergabung dengan FADD dan RIPK1 untuk membentuk kompleks yang mengaktifkan RIPK3 untuk menggalakkan pembentukan nekrosom.
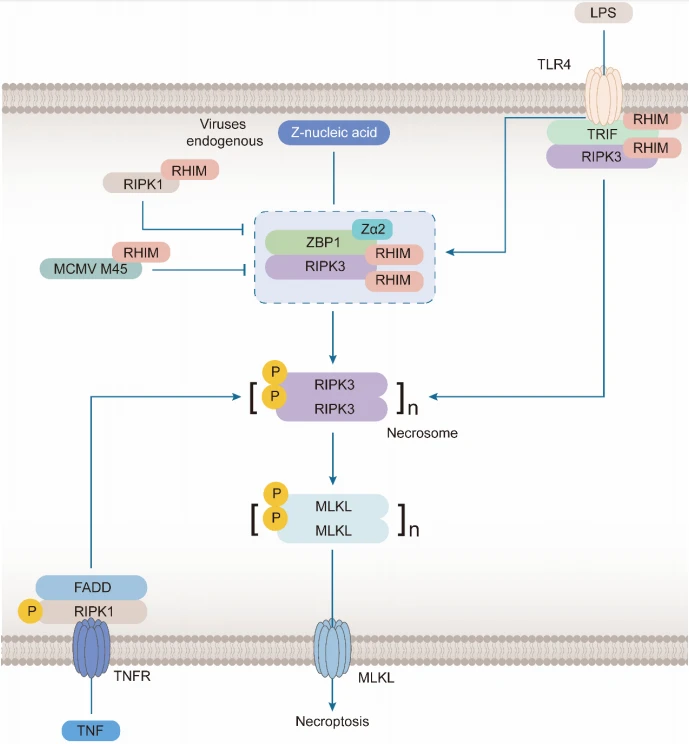
Rajah 3. ZBP1 mendorong pembentukan mikrosom dalam Necroptosis
3.1.2. Gabungan ZBP1 dan RIPK1
Kedua-dua RIPK1 dan ZBP1 mengandungi domain RHIM, mencadangkan interaksi langsung [88]. ZBP1, sebagai protein RHIM, bukan sahaja mengambil bahagian dalam nekroptosis tetapi juga mengawal apoptosis menggunakan Caspase-8 sebagai pelaksana utama dengan mengawal pembentukan kompleks yang dipanggil TRIFosome [42]. TRIFosome terdiri daripada ZBP1, RIPK1, FADD dan Caspase-8. Dalam kes induksi LPS, TLR4 merekrut RIPK1 melalui TRIF terikat kepada ZBP1, menghasilkan pemasangan TRIFosome, diikuti dengan pengaktifan Caspase-8, mengakibatkan apoptosis [34]. Di samping itu, pembentukan kompleks ini juga penting untuk pengaktifan inflammasom. Dalam kajian lain, interaksi antara ZBP1 dan RIPK1 juga mengaktifkan laluan NF-κB [26], yang membawa kepada pengaktifan jenis I IFN dan sitokin lain.
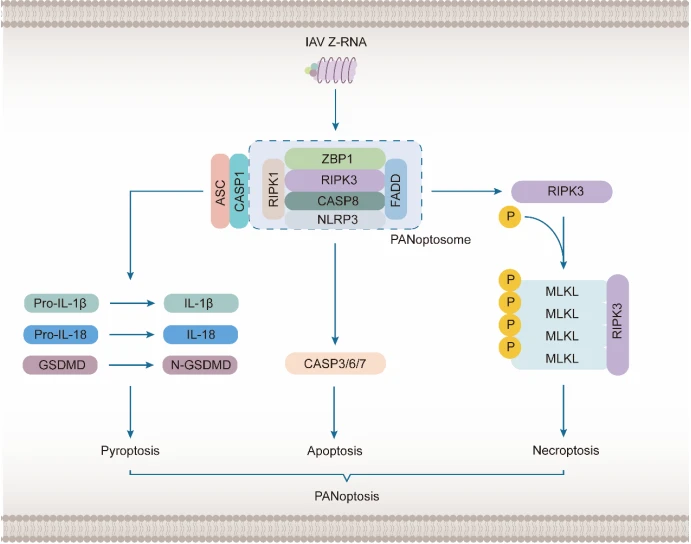
Rajah 4. ZBP1 Menginduksi PANoptosis berikutan Jangkitan IAV
PANoptosis mewakili gabungan pyroptosis, apoptosis, dan nekroptosis, yang dimediasi oleh ZBP1 berikutan jangkitan IAV dan jangkitan dan keradangan virus lain. Selepas mengesan sejumlah besar IAV Z-RNA, ZBP1 boleh bergabung dengan RIPK1, RIPK3, Caspase-8, FADD, NLRP3, ASC dan Caspase-1 untuk membentuk kompleks gergasi yang dipanggil PANoptosome. Antara molekul ini, RIPK1, RIPK3, FADD dan caspase-8 berkaitan dengan apoptosis. Pengaktifan molekul akhirnya mendorong pengaktifan caspase-8, yang bertindak pada pelaksana Caspase-3/6/7 dan membawa kepada apoptosis. Walaupun RIPK3 terutamanya berkaitan dengan nekroptosis, RIPK1 dan FADD juga dianggap memainkan peranan positif dalam kejadian nekroptosis. Pengaktifan RIPK3 secara langsung mengaktifkan dan mengoligomerkan MLKL, pelaksana nekroptosis, untuk membentuk saluran ion yang memusnahkan membran plasma. NLRP3, ASC dan Caspase{19}} ialah molekul utama dalam kejadian pyroptosis. Mereka boleh membentuk inflammasom NLRP3 untuk menggalakkan penjanaan pelaksana akhir pyroptosis. NLRP3 bertanggungjawab untuk mengesan rangsangan yang sepadan. ASC mempunyai domain PYD dan domain CEAD yang boleh diambil oleh NLRP3 dan kemudian merekrut Caspase-1. Caspase-1 membelah dan mengaktifkan pelaksana akhir, GSDMD. Pyroptosis disebabkan terutamanya oleh domain N-terminal GSDMD, yang boleh dipindahkan ke membran sel dan menggalakkan pembentukan liang, yang membawa kepada pembebasan sitokin pro-radang IL-1 dan IL-18.
4. Peranan ZBP1 dalam Penyakit Manusia
Dalam penyakit manusia yang disebabkan oleh virus, seperti influenza dan cacar, laluan isyarat pengantara ZBP1-mengawal kematian terprogram sel yang dijangkiti dan tindak balas keradangan yang berkaitan [37,102]. Di samping itu, ZBP1 juga memainkan peranan penting dalam mengawal nekroptosis dalam penyakit manusia lain, seperti kanser dan penyakit radang sistemik (Jadual 1).
Jadual 1. ZBP1 mengantara kematian sel dan keradangan dalam penyakit yang berbeza.

4.1. ZBP1 sebagai Sensor IAV-Induced Necroptosis
IAV ialah virus RNA antisens kepunyaan keluarga Orthomyxoviridae, yang menyebabkan kerosakan paru-paru dan penyakit berkaitan dalam mamalia yang dijangkiti [108]. Dalam beberapa tahun kebelakangan ini, kajian yang melibatkan penyakit manusia oleh ZBP1 tertumpu kepada kehilangan paru-paru yang disebabkan oleh jangkitan IAV. Sementara itu, kajian yang melibatkan sel tetikus yang dijangkiti oleh IAV turut mendedahkan pelbagai mekanisme huluan dan hiliran ZBP1-nekroptosis pengantara [33]. Kemungkinan ZBP1 sebagai sensor DNA sitoplasma telah dicadangkan untuk masa yang lama. Menjelang 2016, kajian yang berkaitan menetapkan bahawa ZBP1 ialah sensor kongenital IAV, dan ZBP1 merasakan RNA genomik IAV untuk mengaktifkan RIPK3 [26]. Semasa jangkitan IAV, peranan penderiaan ZBP1 telah dimediasi oleh gabungan subunit polimerase PB1 dan nukleoprotein NP. Dalam kajian berkaitan pada tahun 2017 [35], telah dicadangkan bahawa ZBP1 mengiktiraf kompleks vRNP, yang terdiri daripada genom RNA IAV, pelbagai NP dan PB. Pengaktifan ZBP1 juga mungkin memerlukan transduksi isyarat RIG-I dan ubiquitination. Walau bagaimanapun, domain Z 2 ZBP1 memainkan peranan penting dalam transduksi isyarat dengan mengikat secara langsung dengan Z-NA. Dalam kajian IAV, beberapa molekul mengawal kematian sel yang disebabkan oleh ZBP1-dengan cara yang berbeza, termasuk IRF1 [109], Caspase-6 [110] dan TRIM34 [111]. Faktor pengawalseliaan IFN (IRF) 1 ialah molekul yang mengimbangi transkripsi ZBP1. Walau bagaimanapun, dalam sel tetikus yang dijangkiti IAV, IRF1 sahaja tidak boleh mengubah kematian sel dan tindak balas keradangan yang disebabkan oleh ZBP1, mungkin kerana ia hanya salah satu faktor yang mempengaruhi ekspresi ZBP1, dan peranannya boleh digantikan oleh molekul lain yang serupa. Caspase-6 dianggap sebagai caspase pelaksana, yang memainkan peranan dalam pelaksanaan apoptosis [112]. Walau bagaimanapun, kajian mendapati bahawa Caspase-6 boleh menggalakkan tiga jenis utama kematian sel terprogram dalam jangkitan IAV dengan mengikat RIPK3 dan menguatkan pembentukan kompleks PANoptosis. TRIM34 ialah ahli keluarga motif tiga pihak (TRIM) [113]. Ramai ahli keluarga TRIM mempamerkan aktiviti ligase ubiquitin E3 [114]. Ia berkaitan dengan polyubiquitination K63 pada residu K17 ZBP1, yang menggalakkan gabungan ZBP1 dan RIPK3. Dari perspektif lain, kajian ZBP1 dalam jangkitan IAV mendedahkan jenis RNA yang diiktiraf oleh ZBP1. Kajian di atas juga menunjukkan bahawa serpihan gen IAV pendek mungkin digunakan sebagai ligan untuk pengiktirafan ZBP1. Sehubungan itu, satu kajian pada 2020 melaporkan bahawa IAV menjana Z-RNA melalui DVG untuk ZBP1 [37]. Selepas jangkitan IAV, RNA genomik memasuki nukleus tuan rumah untuk menggalakkan replikasi diri, sebagai tambahan kepada pengaktifan nekroptosis dalam nukleus, yang berbeza daripada laluan diaktifkan TNF klasik yang berlaku dalam sitoplasma. Zarah "gangguan cacat" (DI) yang dibentuk oleh pembungkusan DVG yang membawa kepekatan DVG RNA yang lebih tinggi boleh mencetuskan fosforilasi pesat MLKL. Penggunaan serum anti-Z-NA jelas boleh mengotorkan nukleus semasa jangkitan sebelumnya. Dalam proses ini, ZBP1 direkrut dari sitoplasma ke nukleus. MLKL, pelaksana nekroptosis, juga terletak di dalam nukleus dan mengantara pecahnya membran nuklear tanpa apoptosis. Pembebasan DAMP nuklear seterusnya menggalakkan pengambilan dan pengaktifan neutrofil, yang memburukkan gejala jangkitan IAV. Mekanisme spesifik nekroptosis yang mendorong IAV juga disahkan dalam keluarga Orthomyxoviridae yang lain, menunjukkan fungsi teras ZBP1 dalam mengesan nekroptosis yang dimediasi Z-NA [38].
4.2. ZBP1-Kematian Sel Radang Bergantung dalam Jangkitan Coronavirus
Coronavirus telah mendapat perhatian meluas berikutan wabak pada 2019 [115,116]. Coronavirus ialah virus RNA positif rantai tunggal, yang boleh dikelaskan kepada tujuh jenis: 2019 nCoV, HCoV-229E, HCoV-OC43, HCoV-NL63, HCoV HKU1, SARS CoV dan MERS CoV [117]. Antaranya, jangkitan SARS CoV-2 menyebabkan keradangan pernafasan pada perumah tetapi juga kerosakan saraf, mengakibatkan pelbagai komplikasi sistem saraf [118,119]. Walau bagaimanapun, seawal 2017, didapati bahawa coronavirus manusia mendorong nekroptosis sel saraf manusia [120]. Strain HCoV-OC43 menjangkiti tikus dan mendorong kematian sel saraf dalam jumlah besar bergantung kepada RIPK1/3 dan MLKL melalui nekroptosis. Induksi kematian sel, juga ditemui dalam virus hepatitis tikus (MHV), yang homolog dengan coronavirus pada tikus, malah mendorong tindak balas keradangan dan kematian sel dengan PANoptosis sebagai teras [98]. Ia juga menunjukkan bahawa konsep PANoptosis boleh digunakan secara meluas untuk kajian jangkitan virus. Tikus transgenik (K18-hACE2) yang mengekspresikan enzim penukar angiotensin manusia 2 di bawah promoter sitokeratin 18 digunakan secara meluas untuk mengkaji patogenesis jangkitan SARS CoV-2 [121]. Barisan kultur sel saraf K18-hACE2 dan otak selepas jangkitan SARS CoV-2 menunjukkan penyelarasan gen yang berkaitan dengan keradangan. Selain itu, paras protein dan mRNA ZBP1 dan pMLKL juga meningkat 1 hingga 3 hari selepas jangkitan, yang secara langsung menunjukkan bahawa ZBP1 yang disebabkan oleh SARS CoV-2 mengantara kejadian nekroptosis [122]. Terapi IFN untuk SARS CoV-2 mempunyai nilai terhad dan juga kesan negatif [19]. Sebab utama ialah rawatan dengan IFN eksogen meningkatkan PANoptosis1-pengantara ZBP dan ribut sitokin semasa jangkitan coronavirus, yang membawa kepada kecederaan paru-paru dan juga kematian individu. Kajian ini juga mendapati bahawa ekspresi tinggi ZBP1 dan IFN sering berlaku pada pesakit kritikal dengan COVID-19, menunjukkan bahawa molekul ini memainkan peranan negatif dalam rawatan penyakit. Ini juga menyediakan strategi untuk terapi kombinasi dengan menyekat ZBP1 semasa terapi IFN. Molekul khusus mengawal penderiaan ZBP1 nekroptosis pengantara Z-NA dalam coronavirus, yang mungkin dikaitkan dengan evolusi bersama virus dan sistem pertahanan imun hos. Protein bukan struktur 13 (Nsp13) yang wujud dalam SARS CoV mempamerkan fungsi ini. Nsp13 ialah helikase dan membawa domain RHIM yang berpotensi [123]. Ia mungkin menghalang kematian sel pengantara ZBP1-dengan menghalang pembentukan Z-RNA dan menghalang interaksi antara ZBP1 dan RIPK3. Secara keseluruhannya, kematian sel bergantung kepada ZBP1-dan tindak balas keradangan mempunyai kepentingan positif atau negatif dalam penyakit yang disebabkan oleh jangkitan coronavirus. Kajian ZBP1-panoptosis pengantara mungkin memberikan sokongan teori yang penting untuk pengampunan dan rawatan SARS.

cistanche tubulosa-meningkatkan sistem imun
4.3. Virus Vaccinia Menghalang ZBP1-Mediated Necroptosis
VACV ialah virus pox, iaitu virus DNA rantai dua [124]. Ia berkait rapat dengan virus cacar dan cacar lembu dalam imuniti dan boleh digunakan sebagai vaksin terhadap cacar. VACV mempamerkan pelarian imun, dimediasi melalui hampir satu pertiga daripada gennya. Salah satu gen pelarian utama, E3L, mengekod protein E3. E3 mempunyai domain pengikat RNA (dsRNA)--double di terminal C dan domain pengikat asid nukleik Z di terminal N [125]. Domain C-terminal telah ditunjukkan untuk menghalang pengaktifan enzim antivirus yang bergantung kepada dsRNA yang disebabkan oleh IFN. Domain Z terminal N berkaitan dengan ZBP{15}}nekroptosis pengantara [24]. Dalam kajian ini, jenis WT VACV dan VACV-E3L ∆ 83N dengan domain Z yang dipadamkan E3 digunakan untuk menjangkiti sel L929 tetikus yang dirawat IFN untuk meneroka peranan dan mekanisme terminal E3 N, yang menunjukkan peranannya dalam perencatan aktiviti IFN. Sel yang dijangkiti virus kekurangan E3-menunjukkan nekroptosis bergantung kepada RIPK3-, manakala domain Z terminal N E3 bersaing dengan ZBP1 untuk menghalang pengaktifan bergantung kepada RIPK31-ZBP dalam sel yang dijangkiti VACV . Selanjutnya, VACV hanya menghalang nekroptosis pengantara ZBP1-tetapi bukan nekroptosis pengantara RIPK1-dalam laluan yang disebabkan oleh TNF. Mengenai perencatan nekroptosis, strategi lain juga telah ditemui dalam poxvirus [126]. Virus MLKL protein yang diperoleh daripada BeAn 58,058 dan Cotia poxvirus menyekat pengaktifan MLKL dan nekroptosis dalam sel dengan mengasingkan RIPK3. Kajian VACV, atau keseluruhan poxvirus, adalah sangat penting dalam saringan untuk perencat nekroptosis.
4.4. Tekanan Haba Mengaktifkan ZBP1 melalui Mekanisme Bebas Z-NA dalam Strok Haba
Strok haba adalah penyakit yang dikaitkan dengan suhu badan yang tinggi dan gangguan metabolik terutamanya disebabkan oleh tekanan haba [127]. Dalam kes yang teruk, tindak balas keradangan sistemik dan pelbagai kegagalan organ mungkin berlaku, mengakibatkan kematian. Di sini, kami membincangkan secara khusus peranan ZBP1 dalam penyakit ini kerana kajian berkaitan terkini pada tahun 2022 [104] melaporkan mekanisme nekroptosis yang unik. Kajian itu mula-mula menunjukkan bahawa tekanan haba mendorong kematian sel serta tindak balas keradangan lain melalui RIPK3-pengaktifan bergantung MLKL dan Caspase-8 dalam tikus dan sel L929, mengakibatkan manifestasi patologi strok haba. Dalam ZBP1-sel yang rosak tetapi tidak kekurangan protein berinteraksi RIPK3 yang lain, tanda-tanda yang dikaitkan dengan semua jenis kematian sel yang disebabkan oleh tegasan haba hilang, seperti pemfosforilan RIPK3 dan MLKL, yang berbeza daripada tekanan haba dalam sel normal . Oleh itu, ZBP1 ialah molekul utama yang dikaitkan dengan RIPK{11}}kematian sel pengantara dalam tekanan haba. Dalam garisan sel HT{12}} manusia yang menyatakan RIPK3 dan RIPK1 tetapi bukan ZBP1, tekanan haba tidak menyebabkan kematian sel. Walau bagaimanapun, penggunaan ZBP1 manusia eksogen meningkatkan kepekaannya terhadap kematian sel yang disebabkan oleh tekanan haba, yang selanjutnya menunjukkan bahawa ZBP1 memainkan peranan penting dalam kematian sel yang disebabkan oleh tekanan haba. Faktor transkripsi kejutan haba 1 (HSF1), sebagai molekul pengawalseliaan dalam tegasan haba, telah didapati menjadi faktor utama dalam mempromosikan ekspresi ZBP1 dalam tegasan haba [128]. Terutama, peningkatan dalam ekspresi ZBP1 sahaja tidak mencukupi untuk kematian sel. Dalam tekanan haba, pengaktifan ZBP1 berlaku melalui mekanisme bebas Z-NA, yang mungkin berkaitan dengan pergantungannya pada domain RHIM untuk pengagregatan. Kajian ini sudah pasti memberikan gambaran tentang peranan ZBP1. Pengaktifan ZBP1 dan induksi kematian sel tidak semestinya memerlukan pengesanan patogen atau Z-NA endogen. Sudah tentu, mekanisme unik ini memerlukan kajian lanjut. Di antara pelbagai jangkitan patogen, demam tinggi juga merupakan gejala biasa, di mana tekanan haba boleh menghapuskan patogen dengan mengaktifkan ZBP1 untuk menggalakkan kematian sel. Walau bagaimanapun, tekanan haba yang berlebihan juga memberi kesan buruk kepada organisma.
4.5. Penyakit Lain
ZBP1, sebagai molekul pengawalseliaan utama kematian dan keradangan sel, memainkan peranan dalam banyak penyakit manusia sebagai tambahan kepada yang disebutkan di atas. Jangkitan Human Cytomegalovirus (HCMV) menyebabkan penyakit visceral. ZBP1-terinduksi transkripsi IRF3 dan ekspresi IFN. Ekspresi berlebihan ZBP1 menghalang replikasi HCMV [105]. Dalam keradangan saluran udara kronik yang disebabkan oleh merokok, ZBP1 mendorong keradangan dengan mengikat DNA mitokondria (mtDNA) yang rosak yang dilepaskan ke dalam sitoplasma di bawah tekanan oksidatif [29]. Satu lagi penyakit penting manusia yang berkaitan dengan ZBP1 ialah kanser. ZBP1 memainkan peranan penting dalam pelbagai peringkat tumor dan mungkin menjadi sasaran terapeutik [129]. Semasa perkembangan tumor pepejal, nekroptosis mungkin berlaku di kawasan teras, yang dipanggil nekroptosis tumor, yang boleh menyebabkan metastasis tumor [130]. Kajian berdasarkan model kanser payudara MVT-1 menunjukkan bahawa ZBP1, bukannya RIPK1, mengantara nekroptosis tumor [20]. Ekspresi kuat ZBP1 dan RIPK3 dalam nekroptosis juga disahkan dalam jenis tumor pepejal lain. Di samping itu, nekroptosis tumor kemungkinan besar disebabkan oleh kekurangan glukosa (GD) dan mungkin dimediasi melalui mtDNA, yang dikeluarkan oleh tekanan di bawah peraturan GD dan diiktiraf oleh domain Z ZBP. Keberkesanan anti-tumor radioterapi mungkin berkaitan dengan hubungan antara ZBP1-nekroptosis pengantara dan perangsang laluan gen interferon (STING) dalam tumor [106]. Kesan perencatan radioterapi pada pertumbuhan tumor dalam barisan sel adenokarsinoma kolon tikus MC38 dan garisan sel melanoma tetikus B16-SEY secara langsung berkaitan dengan ekspresi MLKL dalam sel tumor, melalui isyarat nekroptosis pengantara ZBP1- transduksi. Selanjutnya, semasa radioterapi, nekroptosis ZBP1-MLKL menggalakkan pengaktifan STING dan tindak balas IFN jenis I dalam sel tumor yang mengumpul mtDNA sitoplasma. ZBP1-nekroptosis pengantara boleh dipertingkatkan melalui ablasi gen Caspase-8 dalam sel tumor untuk meningkatkan kesan radioterapi. Fisetin adalah flavonoid semulajadi yang digunakan secara rutin untuk menghalang perkembangan kanser. Ia menggalakkan kematian saluran sel kanser ovari manusia melalui ZBP1-nekroptosis pengantara dan mekanisme lain [107]. Walau bagaimanapun, mekanisme kematian sel yang disebabkan oleh fisetin dan penggunaannya memerlukan siasatan lanjut. ZBP{30}}kematian sel pengantara dan laluan isyarat intrasel yang lain juga berlaku dalam penyakit neurodegeneratif, pelbagai keradangan, jangkitan kulat, bakteria dan T. gond ii serta patologi lain. Semua jenis penyakit berkaitan dengan nekroptosis, mencadangkan keperluan untuk mengenal pasti mekanismenya dalam patologi yang berbeza.
5. Peraturan dan Prospek ZBP1
Semasa peraturan ZBP1, kajian baru-baru ini telah mengenal pasti beberapa molekul penting yang boleh menjejaskan fungsi ZBP1 dalam aspek yang berbeza. Di peringkat transkripsi, IRF1 dan HSF1 mengawal ZBP1 dan dengan itu mempromosikan ekspresi ZBP1. TRF3-Thr-AGT mengurangkan ZBP1. IRF1 adalah ahli keluarga faktor transkripsi IRF dan pertama kali dikenal pasti sebagai pengaktif transkripsi gen IFN dan IFN-stimulated (ISG) [131]. Dalam sel kekurangan IRF1 yang dijangkiti IAV, tahap ekspresi ZBP1 telah dikurangkan, yang juga disahkan dalam pelbagai sel dan di bawah keadaan rangsangan yang berbeza [109]. Kesan pengawalseliaan HSF1 pada ZBP1 adalah sama seperti yang diterangkan sebelum ini [104]. Terdapat tapak pengikat HSF1 di rantau promoter ZBP1, dan pemadaman tapak ini atau HSF1 menghalang peningkatan ekspresi ZBP1 yang disebabkan oleh tekanan haba. RNA pemindahan endogen (tRNA) ialah sejenis RNA bukan pengekodan, dan RNA kecil yang diperolehi (tsRNA) berkaitan dengan banyak penyakit [132,133]. TRF3-Thr-AGT yang disaring daripada mereka telah terbukti berkait rapat dengan perkembangan pankreatitis akut (AP). Bioinformatik meramalkan bahawa TRF3-Thr-AGT boleh mengikat 30 wilayah yang belum diterjemahkan (30 UTR) ZBP1. Percubaan juga membuktikan bahawa perencatan TRF3-Thr-AGT berlebihan pada kematian sel dalam model AP boleh dihapuskan dengan mengawal selia ZBP1 [134]. Ia mencadangkan bahawa tRF3-Thr-AGT menghalang kematian dan keradangan sel dengan menyahaktifkan laluan ZBP1/NLRP3. Caspase-6, TRIM34, Pyrin, AIM2 dan ABT-737 menggalakkan kematian sel melalui interaksi yang dipertingkatkan antara ZBP1 dan RIPK3. Sebaliknya, MCMV M45 [135], IE3 [136], VZV ORF20 [137], VACV E3 [24,103,138], virus herpes simplex jenis 1(HSV1) ICP6 [139,140] dan RIPK1 [21,141,142] yang kebanyakannya membawa domain RIM. bergabung dengan ZBP1 dan RIPK3. Di bawah jangkitan IAV, Caspase-6 boleh bergabung dengan RIPK3 untuk menguatkan pembentukan PANoptosom, dan kedua-dua agregat besar dan kecil Caspase-6 adalah penting untuk pengikatan RIPK3 kepada ZBP1 [110]. Perkaitan antara TRIM34 dan ZBP1 menggalakkan pengambilan ZBP1 bagi RIPK3 dan TRIM34 mengantara K63-polyubiquitination berkait ZBP1 pada residu K17 [111]. Tidak hadir dalam melanoma 2 (AIM2) ialah ahli keluarga protein domain Pyrin dan HIN, yang boleh mengenali DNA untai dua untuk membentuk inflammasom. Dalam jangkitan HSV1 dan F. novi cida, AIM2, Pyrin dan ZBP1 bersama-sama dengan ASC, Caspase-1, Caspase-8, RIPK3, RIPK1 dan FADD membentuk kompleks berbilang protein besar yang dipanggil AIM2 PANoptosome, yang memacu PANoptosis [96]. ABT-737 ialah Bcl-2 homologi 3-ubat mimetik. Dalam sel-sel kanser pundi kencing, ABT-737 mendorong nekrosis sel apabila ZBP1 atau RIPK3 dirobohkan, yang dicapai dengan mengawal selia interaksi antara ZBP1 dan RIPK3 [143]. Molekul yang boleh menghalang interaksi ZBP1 dan RIPK3 kebanyakannya wujud dalam virus dan mempunyai domain RHIM, yang mungkin hasil evolusi bersama virus dan pertahanan imun hos [144]. Selain itu, RIPK1, sebagai molekul yang mendorong nekroptosis dalam kebanyakan kes, boleh digabungkan secara kompetitif dengan RIPK3 dalam pembangunan dan nekroptosis pengantara Z-NA endogen untuk memainkan peranan yang menghalang. Beberapa molekul juga secara tidak langsung mengawal ZBP1. PUMA boleh diinduksi oleh nekroptosis dan mengaktifkan sensasi ZBP1 dengan mempromosikan pelepasan mtDNA [145]. Nonylphenol (NP) mengurangkan tahap metilasi promoter ZBP1 dan menggalakkan ekspresi ZBP1 dengan menghalang pengikatan kawasan promoter lncRNA PVT1, EZH2, DNMT1, dan ZBP1 [146]. CBL0137 mengaktifkan ZBP{123}}nekroptosis pengantara dengan menggalakkan sintesis Z-DNA. Penemuan molekul pengawalseliaan tambahan dalam penyakit berbeza yang berkaitan dengan ZBP1 dan patogen yang dikenal pasti juga merupakan strategi penyelidikan teras [47]. Walau bagaimanapun, perencat kimia yang menjejaskan ZBP1 secara langsung tidak tersedia pada masa ini.
6. Kesimpulan
Kajian yang menyiasat ZBP1 berasal dari domain Z dan RHIMnya, yang berinteraksi dengan molekul lain di hulu atau hilir semasa penghantaran isyarat. Pada masa ini, kajian mencadangkan bahawa ZBP1 mengiktiraf Z-NA, dimediasi secara langsung oleh domain Z kedua di terminal N. Selanjutnya, nekroptosis ialah laluan pengantara ZBP1-yang paling banyak dikaji. Walaupun ZBP1-nekroptosis pengantara bukanlah laluan paling klasik, ZBP1-nekroptosis teraruh melalui paksi RIPK3-MLKL telah ditubuhkan dalam pelbagai penyakit manusia, menunjukkan bahawa ZBP1 mungkin sasaran terapeutik yang berpotensi. Analisis peranan klasik ZBP1 dalam jangkitan virus juga berkaitan dengan peranan asalnya sebagai sensor virus. Dalam kajian IAV, vRNA-mediated oleh DVG menghasilkan RNP dan telah dikenal pasti oleh ZBP1. Di samping itu, asid nukleik endogen telah diiktiraf oleh ZBP1. MtDNA [29] dan dsRNA [38] daripada ERE boleh menyebabkan pelbagai keradangan kronik melalui ZBP{15}}mekanisme pertahanan imun pengantara. Pada masa hadapan, peranan ZBP1 dalam jangkitan virus yang berbeza perlu diterokai untuk menentukan jujukan genom yang menghasilkan Z-NA. ZBP1 mengantara laluan kematian sel lain, seperti apoptosis, pyroptosis, dan PANoptosis, yang mengintegrasikan dua bekas dan nekroptosis. Ia juga menjadi tumpuan penyelidikan semasa dan akan datang, termasuk jangkitan SARS-CoV-2 dan kawalan tumor. Adalah berbaloi untuk meneroka mekanisme ZBP1 dalam penyakit yang berbeza. Dari segi peraturan ZBP1, kajian sedia ada mendapati bahawa banyak molekul boleh menjejaskan fungsi ZBP1 pada tahap transkrip, interaksinya dengan proteinnya, dan secara tidak langsung. Adalah sangat penting untuk terus mencari lebih banyak molekul berkaitan di kawasan ini dan meneroka molekul yang boleh menjejaskan tindakan ZBP1 dengan cara lain. Selain itu, terdapat kekurangan bahan molekul kecil yang boleh disintesis secara in vitro dan secara langsung menjejaskan fungsi kematian sel pengantara ZBP1-dalam bidang yang berkaitan pada masa ini, yang akan kami cari secara aktif pada masa hadapan.
Rujukan
1. Nirmala, JG; Lopus, M. Mekanisme kematian sel dalam eukariota. Biol Sel. Toksik. 2020, 36, 145–164. [CrossRef] [PubMed]
2. Kerr, JFR; Wyllie, AH; Currie, AR Apoptosis: Fenomena Biologi Asas dengan Implikasi Luas dalam Kinetik Tisu. Br. J. Kanser 1972, 26, 239–257. [CrossRef] [PubMed]
3. Majno, G.; Joris, I. Apoptosis, onkosis, dan nekrosis. Gambaran keseluruhan kematian sel. Am. J. Pathol. 1995, 146, 3–15. [PubMed]
4. Elmore, S. Apoptosis: Kajian Kematian Sel Berprogram. Toksik. Pathol. 2007, 35, 495–516. [CrossRef] 5. Sen, S. Kematian sel terprogram: Konsep, mekanisme dan kawalan. biol. Rev. Camb. Philos. Soc. 1992, 67, 287–319. [CrossRef]
6. Ashkenazi, A.; Fairbrother, WJ; Leverson, JD; Souers, AJ Daripada penemuan apoptosis asas kepada perencat keluarga BCL{1}} terpilih lanjutan. Nat. Rev. Drug Discov. 2017, 16, 273–284. [CrossRef]
7. Fan, T.-J.; Han, L.-H.; Cong, R.-S.; Liang, J. Protease Keluarga Caspase dan Apoptosis. Acta Biochim. Et Biophys. Dosa. 2005, 37, 719–727. [CrossRef]
8. Farber, E. Kematian sel terprogram: Nekrosis berbanding apoptosis. Mod. Pathol. 1994, 7, 605–609.
9. Galluzzi, L.; Kroemer, G. Necroptosis: Laluan Khusus Nekrosis Diprogram. Sel 2008, 135, 1161–1163. [CrossRef]
10. Frank, D.; Vince, JE Pyroptosis versus nekroptosis: Persamaan, perbezaan dan crosstalk. Kematian Sel Berbeza. 2019, 26, 99–114. [CrossRef]
11. Malireddi, RKS; Gurung, P.; Kesavardhana, S.; Samir, P.; Burton, A.; Mummareddy, H.; Vogel, P.; Pelletier, S.; Burgula, S.; Kanneganti, T.-D. Penyebuan imun semula jadi tanpa ketiadaan TAK1 memacu RIPK1 kinase bebas aktiviti pyroptosis, apoptosis, nekroptosis dan penyakit radang. J. Exp. Med. 2020, 217, jem.20191644. [CrossRef] [PubMed]
12. McKenzie, BA; Dixit, VM; Kuasa, C. Kematian Sel Berapi: Pyroptosis dalam Sistem Saraf Pusat. Trend Neurosci. 2020, 43, 55–73. [CrossRef] [PubMed]
13. Shi, J.; Gao, W.; Shao, F. Pyroptosis: Kematian Sel Necrotic yang Diprogramkan oleh Gasdermin. Trend Biochem. Sci. 2017, 42, 245–254. [CrossRef]
14. Fu, Y.; Comella, N.; Tognazzi, K.; Brown, LF; Dvorak, HF; Kocher, O. Pengklonan DLM-1, gen baru yang dikawal selia dalam makrofaj diaktifkan, menggunakan paparan pembezaan RNA. Gene 1999, 240, 157–163. [CrossRef] [PubMed]
15. Schwartz, T.; Behlke, J.; Lowenhaupt, K.; Heinemann, U.; Rich, A. Struktur kompleks DLM-1–Z-DNA mendedahkan keluarga terpelihara protein pengikat Z-DNA. Nat. Struktur. biol. 2001, 8, 761–765. [CrossRef]
16. Takaoka, A.; Wang, Z.; Choi, MK; Yanai, H.; Negishi, H.; Ban, T.; Lu, Y.; Miyagishi, M.; Kodama, T.; Honda, K.; et al. DAI (DLM-1/ZBP1) ialah penderia DNA sitosol dan pengaktif tindak balas imun semula jadi. Alam 2007, 448, 501–505. [CrossRef] [PubMed]
17. Lelaki, SM; Karki, R.; Kanneganti, T.-D. Mekanisme molekul dan fungsi pyroptosis, caspases radang dan inflammasom dalam penyakit berjangkit. Immunol. Wahyu 2017, 277, 61–75. [CrossRef]
18. Upton, JW; Kaiser, WJ; Mocarski, ES DAI/ZBP1/DLM-1 Kompleks dengan RIP3 untuk Mengantara Nekrosis Diprogram Akibat Virus yang Disasarkan oleh Murine Cytomegalovirus vIRA. Mikrob Hos Sel 2012, 11, 290–297. [CrossRef]
19. Karki, R.; Lee, S.; Mall, R.; Pandian, N.; Wang, Y.; Sharma, BR; Malireddi, RS; Yang, D.; Trifkovic, S.; Steele, JA; et al. ZBP1-kematian sel radang, apoptosis dan ribut sitokin yang bergantung kepada ZBP mengganggu keberkesanan terapi IFN semasa jangkitan coronavirus. Sci. Immunol. 2022, 7, eabo6294. [CrossRef]
20. Baik, JY; Liu, Z.; Jiao, D.; Kwon, H.-J.; Yan, J.; Kadigamuwa, C.; Choe, M.; Tasik, R.; Kruhlak, M.; Tandon, M.; et al. ZBP1 bukan RIPK1 mengantara nekroptosis tumor dalam kanser payudara. Nat. Commun. 2021, 12, 2666. [CrossRef]
21. Devos, M.; Tanghe, G.; Gilbert, B.; Dierick, E.; Verheirstraeten, M.; Nemegeer, J.; de Reuver, R.; Lefebvre, S.; De Munck, J.; Rehwinkel, J.; et al. Pengesanan asid nukleik endogen oleh ZBP1 mendorong nekroptosis keratinosit dan keradangan kulit. J. Exp. Med. 2020, 217, e20191913. [CrossRef] [PubMed]
22. Jin, Q.; Li, T.; Dia, X.; Jia, H.; Chen, G.; Zeng, S.; Fang, Y.; Jing, Z.; Yang, X. Ciri-ciri struktur molekul dan fungsi pengaktif DNA-de pendent tetikus faktor interferon-kawal selia. Xi Bao Yu Fen Zi Mian Yi Xue Za Zhi 2015, 31, 1606–1610. [PubMed]
23. Kesavardhana, S.; Malireddi, RKS; Burton, AR; Porter, SN; Vogel, P.; Pruett-Miller, SM; Kanneganti, T.-D. Domain Z 2 ZBP1 ialah suis molekul yang mengawal selia PANoptosis yang disebabkan oleh influenza dan kematian perinatal semasa pembangunan. J. Biol. Kimia. 2020, 295, 8325–8330. [CrossRef] [PubMed]
24. Koehler, H.; Cotsmire, S.; Langland, J.; Kibler, KV; Kalman, D.; Upton, JW; Mocarski, ES; Jacobs, BL Perencatan nekroptosis yang bergantung kepada DAI oleh domain pengikat Z-DNA bagi protein pengelakan imun semula jadi virus vaccinia, E3. Proc. Natl. Acad. Sci. USA 2017, 114, 11506–11511. [CrossRef] [PubMed]
25. Karki, R.; Sundaram, B.; Sharma, BR; Lee, S.; Malireddi, RKS; Nguyen, LN; Christgen, S.; Zheng, M.; Wang, Y.; Samir, P.; et al. ADAR1 mengehadkan ZBP1-tindak balas imun pengantara dan PANoptosis untuk menggalakkan tumorigenesis. Rep. Sel. 2021, 37, 109858. [CrossRef] [PubMed]
26. Kuriakose, T.; Lelaki, SM; Subbarao Malireddi, RK; Karki, R.; Kesavardhana, S.; Tempat, DE; Neale, G.; Vogel, P.; Kanneganti, T.-D. ZBP1/DAI ialah penderia semula jadi bagi virus influenza yang mencetuskan keradangan NLRP3 dan laluan kematian sel yang diprogramkan. Sci. Immunol. 2016, 1, aag2045. [CrossRef] [PubMed]
27. Ingram, JP; Thapa, RJ; Fisher, A.; Tummers, B.; Zhang, T.; Yin, C.; Rodriguez, DA; Guo, H.; Lorong, R.; Williams, R.; et al. ZBP1/DAI Memacu RIPK3-Kematian Sel Pengantaraan Disebabkan oleh IFN Tanpa Ketiadaan RIPK1. J. Immunol. 2019, 203, 1348–1355. [CrossRef]
28. Pham, CL; Shanmugam, N.; Pelik, M.; O'Carroll, A.; Brown, JW; Sierecki, E.; Gambin, Y.; Steain, M.; Sunde, M. Viral M45 dan protein berkaitan nekroptosis membentuk himpunan amiloid heteromerik. EMBO Rep. 2019, 20, e46518. [CrossRef]
29. Szczesny, B.; Marchetti, M.; Ahmad, A.; Montalbano, M.; Brunyánszki, A.; Bibli, S.-I.; Papapetropoulos, A.; Szabo, C. Kerosakan DNA mitokondria dan pengaktifan seterusnya protein pengikat Z-DNA 1 menghubungkan tekanan oksidatif kepada keradangan dalam sel epitelium. Sci. Rep. 2018, 8, 914. [CrossRef]
30. Ponnusamy, K.; Tzioni, MM; Begum, M.; Robinson, SAYA; Caputo, VS; Katsarou, A.; Trasanidis, N.; Xiao, X.; Kostopoulos, IV; Iskandar, D.; et al. Penderia semula jadi ZBP1-Paksi IRF3 mengawal percambahan sel dalam pelbagai myeloma. Haematologica 2021, 107, 721–732. [CrossRef]
31. Takaoka, A.; Shinohara, S. penderia DNA dalam sistem imun semula jadi. Uirusu 2008, 58, 37–46. [CrossRef] [PubMed]
32. Hao, Y.; Yang, B.; Yang, J.; Shi, X.; Yang, X.; Zhang, D.; Zhao, D.; Yan, W.; Chen, L.; Zheng, H.; et al. ZBP1: Penderia Imun Semula Jadi yang Berkuasa dan Pedang Bermata Dua dalam Kekebalan Hos. Int. J. Mol. Sci. 2022, 23, 10224. [CrossRef] [PubMed]
33. Thapa, RJ; Ingram, JP; Ragan, KB; Nogusa, S.; Boyd, DF; Benitez, AA; Sridharan, H.; Kosoff, R.; Shubina, M.; Landsteiner, VJ; et al. DAI Mengesan RNA Genomik Virus Influenza A dan Mengaktifkan RIPK3-Kematian Sel Bergantung. Mikrob Hos Sel 2016, 20, 674–681. [CrossRef] [PubMed]
34. Kaiser, WJ; Upton, JW; Mocarski, ES Receptor-Interacting Protein Homotypic Interaksi Motif-Bergantung Kawalan Pengaktifan NF-κB melalui Pengaktif Bergantung DNA bagi Faktor Kawal Selia IFN1. J. Immunol. 2008, 181, 6427–6434. [CrossRef] [PubMed]
35. Kesavardhana, S.; Kuriakose, T.; Lelaki, CS; Samir, P.; Malireddi, RKS; Mishra, A.; Kanneganti, T.-D. ZBP1/DAI ubiquitination dan penderiaan vRNP influenza mengaktifkan kematian sel yang diprogramkan. J. Exp. Med. 2017, 214, 2217–2229. [CrossRef] [PubMed]
36. Momota, M.; Lelliott, P.; Kubo, A.; Kusakabe, T.; Kobiyama, K.; Kuroda, E.; Imai, Y.; Akira, S.; Coban, C.; Ishii, KJ ZBP1 mengawal IL-1 bebas inflammasom dan keradangan neutrofil yang memainkan dua peranan dalam imuniti virus anti-influenza. Int. Immunol. 2019, 32, 203–212. [CrossRef] [PubMed]
37. Zhang, T.; Yin, C.; Boyd, DF; Quarato, G.; Ingram, JP; Shubina, M.; Ragan, KB; Ishizuka, T.; Crawford, JC; Tummers, B.; et al. Virus Influenza Z-RNA Mengakibatkan ZBP1-Mediated Necroptosis. Sel 2020, 180, 1115–1129.e13. [CrossRef]
38. Jiao, H.; Wachsmuth, L.; Kumari, S.; Schwarzer, R.; Lin, J.; Eren, RO; Fisher, A.; Lorong, R.; Muda, GR; Kassiotis, G.; et al. Pengesanan asid nukleik Z mencetuskan nekroptosis dan keradangan yang bergantung kepada ZBP1-. Alam Semula Jadi 2020, 580, 391–395. [CrossRef]
39. Pittman, KJ; Cervantes, PW; Knoll, LJ Z-DNA Mengikat Protein Mengantara Kawalan Hos Jangkitan Toxoplasma gond ii. Jangkitan. imun. 2016, 84, 3063–3070. [CrossRef]
40. Cervantes, PW; Genova, BMD; Flores, BJE; Knoll, LJ RIPK3 Memudahkan Penentangan Perumah kepada Jangkitan Toxoplasma gondii Oral. Jangkitan. imun. 2021, 89, e00021-21. [CrossRef]
41. Banoth, B.; Tuladhar, S.; Karki, R.; Sharma, BR; Briard, B.; Kesavardhana, S.; Burton, A.; Kanneganti, T.-D. ZBP1 menggalakkan pengaktifan inflammasom yang disebabkan oleh kulat dan pyroptosis, apoptosis, dan nekroptosis (PANoptosis). J. Biol. Kimia. 2020, 295, 18276–18283. [CrossRef]
42. Muendlein, HI; Connolly, WM; Magri, Z.; Smirnova, I.; Ilyukha, V.; Gautam, A.; Degterev, A.; Poltorak, A. ZBP1 menggalakkan kematian sel akibat LPS dan pelepasan IL-1 melalui interaksi pengantara RHIM dengan RIPK1. Nat. Commun. 2021, 12, 86. [CrossRef] [PubMed]
43. Shubina, M.; Tummers, B.; Boyd, DF; Zhang, T.; Yin, C.; Gautam, A.; Guo, X.-ZJ; Rodriguez, DA; Kaiser, WJ; Vogel, P.; et al. Necroptosis menyekat virus influenza A sebagai mekanisme kematian sel yang berdiri sendiri. J. Exp. Med. 2020, 217, e20191259. [CrossRef] [PubMed]
44. Maelfait, J.; Liverpool, L.; Bridgeman, A.; Ragan, KB; Upton, JW; Rehwinkel, J. Penderiaan RNA virus dan endogen oleh ZBP1/DAI mendorong nekroptosis. EMBO J. 2017, 36, 2529–2543. [CrossRef] [PubMed]
45. Schwarzer, R.; Jiao, H.; Wachsmuth, L.; Tresch, A.; Pasparakis, M. FADD dan Caspase-8 Mengatur Homeostasis dan Keradangan Usus dengan Mengawal Kematian Sel Epitelium Usus yang Dimediasi MLKL dan GSDMD. Kekebalan 2020, 52, 978–993.e6. [CrossRef]
46. Herbert, A. Z-DNA dan Z-RNA dalam penyakit manusia. Commun. biol. 2019, 2, 7. [CrossRef] [PubMed]
47. Zhang, T.; Yin, C.; Fedorov, A.; Qiao, L.; Bao, H.; Beknazarov, N.; Wang, S.; Gautam, A.; Williams, RM; Crawford, JC; et al. ADAR1 menutup janji imunoterapeutik kanser dari nekroptosis yang dipacu ZBP1-. Alam 2022, 606, 594–602. [CrossRef] [PubMed]
48. Ng, SK; Weissbach, R.; Ronson, GE; Scadden, Protein ADJ yang mengandungi domain pengikat Z-DNA berfungsi menyetempat kepada butiran tegasan sitoplasma. Asid Nukleik Res. 2013, 41, 9786–9799. [CrossRef]
49. Jiao, H.; Wachsmuth, L.; Serigala, S.; Lohmann, J.; Nagata, M.; Kaya, GG; Oikonomou, N.; Kondylis, V.; Rogg, M.; Diebold, M.; et al. ADAR1 mengelakkan induksi interferon jenis I yang membawa maut oleh ZBP1. Alam 2022, 607, 776–783. [CrossRef]
50. Hubbard, NW; Ames, JM; Maurano, M.; Chu, LH; Somfleth, KY; Gokhale, NS; Werner, M.; Snyder, JM; Lichauco, K.; Savan, R.; et al. Mutasi ADAR1 menyebabkan imunopatologi bergantung1-ZBP. Alam 2022, 607, 769–775. [CrossRef]
51. de Reuver, R.; Verdonck, S.; Dierick, E.; Nemegeer, J.; Hessmann, E.; Ahmad, S.; Jans, M.; Blancke, G.; Van Nieuwerburgh, F.; Botzki, A.; et al. ADAR1 menghalang autoinflamasi dengan menyekat pengaktifan ZBP1 spontan. Alam 2022, 607, 784–789. [CrossRef] [PubMed]
52. Yang, D.; Liang, Y.; Zhao, S.; Ding, Y.; Zhuang, Q.; Shi, Q.; Ai, T.; Wu, S.-Q.; Han, J. ZBP1 mengantara nekroptosis yang disebabkan oleh interferon. sel. Mol. Immunol. 2020, 17, 356–368. [CrossRef] [PubMed]
53. Goldstein, P.; Kroemer, G. Kematian sel oleh nekrosis: Ke arah definisi molekul. Trend Biochem. Sci. 2007, 32, 37–43. [CrossRef]
54. McCall, K. Kawalan genetik nekrosis-Satu lagi jenis kematian sel yang diprogramkan. Curr. Pendapat. Biol Sel. 2010, 22, 882–888. [CrossRef]
55. Vandenabeele, P.; Galluzzi, L.; Vanden Berghe, T.; Kroemer, G. Mekanisme molekul nekroptosis: Letupan selular yang teratur. Nat. Rev. Mol. Biol Sel. 2010, 11, 700–714. [CrossRef] [PubMed]
56. Li, L.; Tong, A.; Zhang, Q.; Wei, Y.; Wei, X. Mekanisme molekul nekrosis bergantung kepada MLKL dan bebas MLKL. J. Mol. Biol Sel. 2020, 13, 3–14. [CrossRef]
57. Kung, G.; Konstantinidis, K.; Kitsis, RN Programmed Necrosis, Bukan Apoptosis, dalam Jantung. Circ. Res. 2011, 108, 1017–1036. [CrossRef]
58. Matahari, L.; Wang, X. Sejenis bunuh diri sel baharu: Mekanisme dan fungsi nekrosis terprogram. Trend Biochem. Sci. 2014, 39, 587–593. [CrossRef]
59. Zhang, Q.; Wan, X.-X.; Hu, X.-M.; Zhao, W.-J.; Larangan, X.-X.; Huang, Y.-X.; Yan, W.-T.; Xiong, K. Menyasarkan Kematian Sel Berprogram untuk Memperbaiki Terapi Sel Stem: Implikasi untuk Merawat Diabetes dan Penyakit Berkaitan Diabetes. Depan. Pembangun Sel. biol. 2021, 9, 809656. [CrossRef]
60. Hu, X.-M.; Li, Z.-X.; Lin, R.-H.; Shan, J.-Q.; Yu, Q.-W.; Wang, R.-X.; Liao, L.-S.; Yan, W.-T.; Wang, Z.; Shang, L.; et al. Garis Panduan untuk Ujian Kematian Sel Terkawal: Ringkasan Sistematik, Perbandingan Kategori, Bakal. Depan. Pembangun Sel. biol. 2021, 9, 634690. [CrossRef]
61. Yang, Y.-D.; Li, Z.-X.; Hu, X.-M.; Wan, H.; Zhang, Q.; Xiao, R.; Xiong, K. Wawasan tentang Crosstalk Antara Mitophagy dan Apoptosis/Necroptosis: Mekanisme dan Aplikasi Klinikal dalam Strok Iskemia. Curr. Med. Sci. 2022, 42, 237–248. [CrossRef] [PubMed]
62. Liu, S.-M.; Liao, L.-S.; Huang, J.-F.; Wang, S.-C. Peranan Laluan CAST-Drp1 dalam Nekrosis Terkawal Neuron Retina dalam Glaukoma Eksperimen. Curr. Med. Sci. 2022. [CrossRef] [PubMed]
63. Du, X.-K.; Ge, W.-Y.; Jing, R.; Pan, L.-H. Necroptosis dalam makrofaj pulmonari mengantara kecederaan radang paru-paru yang disebabkan oleh lipopolysaccharide dengan mengaktifkan ZBP-1. Int. Immunopharmacol. 2019, 77, 105944. [CrossRef] [PubMed]
64. Murphy, JM; Czabotar, PE; Hildebrand, JM; Lucet, IS; Zhang, J.-G.; Alvarez-Diaz, S.; Lewis, R.; Lalaoui, N.; Metcalf, D.; Webb, AI; et al. Pseudokinase MLKL Mengantara Necroptosis melalui Mekanisme Suis Molekul. Kekebalan 2013, 39, 443–453. [CrossRef]
65. Liao, L.-S.; Lu, S.; Yan, W.-T.; Wang, S.-C.; Guo, L.-M.; Yang, Y.-D.; Huang, K.; Hu, X.-M.; Zhang, Q.; Yan, J.; et al. Peranan HSP90 dalam Necroptosis Akibat Methamphetamine/Hyperthermia dalam Neuron Striatal Tikus. Depan. Pharmacol. 2021, 12, 716394. [CrossRef]
66. Hu, XM; Zhang, Q.; Zhou, RX; Wu, YL; Li, ZX; Zhang, DY; Yang, YC; Yang, RH; Hu, YJ; Xiong, K. Kematian sel terprogram dalam terapi berasaskan sel stem: Mekanisme dan aplikasi klinikal. Sel Stem J. Dunia 2021, 13, 386–415. [CrossRef]
67. Yan, W.-T.; Lu, S.; Yang, Y.-D.; Ning, W.-Y.; Cai, Y.; Hu, X.-M.; Zhang, Q.; Xiong, K. Trend penyelidikan, titik panas dan prospek nekroptosis dalam bidang neurosains. Regen saraf. Res. 2021, 16, 1628–1637.
68. Yamashita, M.; Passegué, E. TNF- Menyelaras Kemandirian Sel Stem Hematopoetik dan Penjanaan Semula Myeloid. Sel Stem Sel 2019, 25, 357–372.e7. [CrossRef]
69. Karki, R.; Sharma, BR; Tuladhar, S.; Williams, EP; Zalduondo, L.; Samir, P.; Zheng, M.; Sundaram, B.; Banoth, B.; Malireddi, RKS; et al. Sinergisme TNF- dan IFN- Mencetuskan Kematian Sel Radang, Kerosakan Tisu dan Kematian dalam Jangkitan-2 SARS-CoV dan Sindrom Kejutan Sitokin. Sel 2021, 184, 149–168.e17. [CrossRef]
70. Chen, A.-Q.; Fang, Z.; Chen, X.-L.; Yang, S.; Zhou, Y.-F.; Mao, L.; Xia, Y.-P.; Jin, H.-J.; Li, Y.-N.; Anda, M.-F.; et al. TNF yang berasal dari mikroglia mengantara nekroptosis endothelial yang memburukkan gangguan penghalang darah-otak selepas strok iskemia. Kematian Sel Dis. 2019, 10, 487. [CrossRef]
71. Bonet, MC; Preukschat, D.; Welz, P.-S.; van Loo, G.; Ermolaeva, MA; Bloch, W.; Haase, I.; Pasparakis, M. Protein Penyesuai FADD Melindungi Keratinosit Epidermis daripada Necroptosis In Vivo dan Mencegah Keradangan Kulit. Kekebalan 2011, 35, 572–582. [CrossRef] [PubMed]
72. Günther, C.; Martini, E.; Wittkopf, N.; Amann, K.; Weigmann, B.; Neumann, H.; Waldner, MJ; Hedrick, SM; Tenzer, S.; Neurath, MF; et al. Caspase-8 mengawal selia TNF- -nekroptosis epitelium dan ileitis terminal. Alam 2011, 477, 335–339. [CrossRef] [PubMed]
73. Newton, K.; Wickliffe, KE; Dugger, DL; Maltzman, A.; Roose-Girma, M.; Dohse, M.; K˝om ˝uves, L.; Webster, JD; Dixit, VM Pembelahan RIPK1 oleh caspase-8 adalah penting untuk mengehadkan apoptosis dan nekroptosis. Alam Semula Jadi 2019, 574, 428–431. [CrossRef] [PubMed]
74. Mrkvová, Z.; Portešová, M.; Slaninová, I. Kehilangan FADD dan Caspases Mempengaruhi Tindak Balas Sel T-Cell Leukemia Jurkat kepada Ubat Anti-Kanser. Int. J. Mol. Sci. 2021, 22, 2702. [CrossRef] [PubMed]
75. Al-Lamki, RS; Lu, W.; Manalo, P.; Wang, J.; Warren, AY; Tolkovsky, AM; Pober, JS; Bradley, JR Sel epitelium tiub dalam karsinoma sel jernih buah pinggang mengekspresikan RIPK1/3 yang tinggi dan menunjukkan peningkatan kerentanan terhadap nekroptosis yang disebabkan oleh reseptor TNF 1-. Kematian Sel Dis. 2016, 7, e2287. [CrossRef] [PubMed]
76. Rodriguez, DA; Weinlich, R.; Brown, S.; Lelaki, C.; Fitzgerald, P.; Dillon, CP; Oberst, A.; Quarato, G.; Rendah, J.; Cripps, JG; et al. Pencirian RIPK3-fosforilasi pengantara bagi gelung pengaktifan MLKL semasa nekroptosis. Kematian Sel Berbeza. 2016, 23, 76–88. [CrossRef]
77. Garcia, LR; Tenev, T.; Newman, R.; Haich, RO; Liccardi, G.; John, SW; Annibaldi, A.; Yu, L.; Pardo, M.; Muda, SN; et al. Ubiquitylation MLKL pada lisin 219 secara positif mengawal kecederaan tisu yang disebabkan oleh nekroptosis dan pembersihan patogen. Nat. Commun. 2021, 12, 3364. [CrossRef]
78. Kaiser, WJ; Offermann, MK Apoptosis Dicetuskan oleh Penyesuai Reseptor Seperti Tol TRIF Bergantung Pada Motif Interaksi Homotip Protein Berinteraksi Reseptornya1. J. Immunol. 2005, 174, 4942–4952. [CrossRef]
79. Hiasan, SE; Meng, Y.; Koide, A.; Sandow, JJ; Denbaum, E.; Jacobsen, AV; Yeung, W.; Samson, AL; Horne, CR; Fitzgibbon, C.; et al. Penukaran konformasi MLKL dan pemisahan daripada RIPK3 mendahului kematian sel oleh nekroptosis. Nat. Commun. 2021, 12, 2211. [CrossRef]
80. Samson, AL; Zhang, Y.; Geoghegan, ND; Gavin, XJ; Davies, KA; Mlodzianoski, MJ; Whitehead, LW; Frank, D.; Hiasan, SE; Fitzgibbon, C.; et al. Pemerdagangan dan pengumpulan MLKL pada membran plasma mengawal kinetik dan ambang untuk nekroptosis. Nat. Commun. 2020, 11, 3151. [CrossRef]