Jalinan Dan Seimbang Halus: Morfologi Retikulum Endoplasma, Dinamik, Fungsi dan Penyakit Bahagian 1
Apr 08, 2024
Abstrak:
Retikulum endoplasma (ER) adalah organel yang bertanggungjawab untuk banyak proses subselular yang penting. Tubul sempit yang saling berkait di pinggir dan kawasan seperti lembaran yang lebih tebal di kawasan perinuklear dikaitkan dengan sampul nuklear.
Retikulum endoplasma adalah organel penting dalam sel. Ia terutamanya terlibat dalam sintesis sel, pemprosesan, rembesan, dan proses lain. Walaupun retikulum endoplasma dan ingatan nampaknya tidak berkaitan secara langsung, ia sememangnya berkait rapat dalam beberapa aspek.
Pertama, retikulum endoplasma terlibat dalam sintesis dan fungsi sel otak. Oleh itu, retikulum endoplasma memainkan peranan yang sangat diperlukan dalam perkembangan normal dan fungsi sel-sel otak. Perkembangan dan fungsi sel otak berkait rapat dengan ingatan manusia, yang bermaksud terdapat juga hubungan antara retikulum endoplasma dan ingatan.
Kedua, di otak, retikulum endoplasma dikaitkan dengan keplastikan sinaptik. Pembentukan dan penyelenggaraan ingatan berkait rapat dengan keplastikan sinaptik. Retikulum endoplasma juga terlibat dalam penjanaan dan pembebasan banyak neurotransmitter semasa sintesis, pemprosesan, dan rembesan protein dalam sel. Neurotransmiter ini berkaitan dengan keplastikan sinaptik. Oleh itu, retikulum endoplasma juga boleh menjejaskan ingatan.
Di samping itu, retikulum endoplasma juga mengambil bahagian dalam proses metabolik sel otak dan mengekalkan tahap metabolisme normal sel. Keabnormalan dalam retikulum endoplasma boleh menjejaskan fungsi fisiologi sel otak, yang mungkin juga menjejaskan fungsi kognitif lanjutan seperti ingatan. Oleh itu, mengekalkan fungsi normal retikulum endoplasma memainkan peranan penting dalam mengekalkan dan meningkatkan kesihatan otak dan fungsi kognitif.
Kesimpulannya, memang terdapat hubungan antara retikulum endoplasma dan ingatan, dan hubungan ini tidak negatif. Oleh itu, dalam kehidupan seharian, untuk mengekalkan kesihatan otak dan meningkatkan ingatan, kita harus memberi perhatian kepada fungsi normal dan tahap metabolik retikulum endoplasma, supaya kita dapat mengekalkan kesihatan dan fungsi kognitif kita dengan lebih baik. Ia dapat dilihat bahawa kita perlu meningkatkan daya ingatan, dan Cistanche deserticola boleh meningkatkan daya ingatan dengan ketara kerana Cistanche deserticola adalah bahan perubatan tradisional Cina yang mempunyai banyak kesan unik, salah satunya adalah untuk meningkatkan daya ingatan. Keberkesanan Cistanche deserticola berasal daripada pelbagai bahan aktif yang terkandung di dalamnya, termasuk asid tannic, polisakarida, glikosida flavonoid, dll. Bahan-bahan ini boleh menggalakkan kesihatan otak melalui pelbagai laluan.

Klik tahu 10 cara untuk meningkatkan ingatan
Ia menjadi jelas bahawa morfologi kompleks dan dinamik ER dikaitkan dengan fungsinya. Mutasi dalam protein yang terlibat dalam mengawal struktur dan pergerakan ER terlibat dalam banyak penyakit termasuk penyakit neurodegeneratif seperti Alzheimer, Parkinson, dan amyotrophic lateral sclerosis (ALS).
ER juga dirampas oleh patogen untuk mempromosikan replikasi mereka. Bakteria seperti Legionella pneumophila danChlamydia trachomatis, serta virus Zika, mengikat morfologi ER dan protein yang mengawal dinamik untuk mengeksploitasi fungsi ER untuk kelebihan mereka.
Kajian ini merangkumi pemahaman kami tentang morfologiER, termasuk subdomain berfungsi dan tapak hubungan membran yang membentuk organel. Kami juga memberi tumpuan kepada dinamik ER dan usaha semasa untuk mengukur gerakan ER dan membincangkan penyakit yang berkaitan dengan morfologi dan dinamik ER.
Kata kunci:
retikulum endoplasma (ER); morfologi; dinamik; penyebaran anomali; tapak sentuhan membran (MCS); dynein; kinesin; mikrotubul.
1. Pengenalan
Retikulum endoplasma (ER) ialah organel subselular yang bertanggungjawab untuk pelbagai fungsi selular yang penting. Dalam ER, protein disintesis dan menjalani pengubahsuaian selepas translasi, ion kalsium disimpan dan dilepaskan seperti yang ditentukan oleh isyarat selular, dan lipid adalah biosintesis.
ER ialah organel terbesar dalam sel dan memanjang sebagai entiti terikat membran berterusan dari sampul nuklear ke pinggir sel dalam rangkaian kompleks tubul dan kawasan seperti lembaran. Dinamik pantas dan organisasi semula, bersama-sama dengan fakta bahawa ER terdiri daripada ~35% daripada isipadu sitoplasma, bermakna ER meneroka isipadu sitoplasma dengan lebih pantas daripada mana-mana organel lain [1].
Sedikit yang difahami setakat ini tentang fungsi dinamik ER atau kesan dinamik dalam penyakit berkaitan ER. Struktur kompleks ER dikekalkan oleh pelbagai protein termasuk retikulon, REEP, dan atlastin [2–4]. Protein yang mengawal morfologi ini menggalakkan kelengkungan membran [2,3], memacu percantuman tubul [4-8], menstabilkan simpang [9-11], mengawal jarak helaian [12-14], dan menambat ER ke mikrotubul [15-17].
Kerjasama antara protein ini adalah penting untuk morfologi normal, dengan ekspresi berlebihan jenis tertentu yang membawa kepada perkadaran abnormal kepingan dan tubul dalam rangkaian [6,9,18]. Protein mikrotubulemotor kinesin-1 dan dynein sitoplasma (dirujuk di sini sebagai dynein) juga mengikat pada retikulum endoplasma untuk memacu pembentukan tubul baru dan secara berterusan dan mengubahsuai rangkaian secara berterusan (cth, [19,20]).
Interaksi antara ER dan organel lain di tapak sentuhan membran (MCS) juga menyumbang kepada dinamik organel (Bahagian 3.1.2). Dinamik ER ialah topik penyelidikan yang baru muncul.

Dari segi sejarah, kelajuan sambungan tubul telah diukur [20-23], tetapi kuantifikasi aspek lain ER dynamicshas telah mencabar kerana batasan dalam mikroskop dan pengiraan. Baru-baru ini, perisian yang direka untuk menganalisis gerakan ER dalam sel hidup telah diterbitkan [24-27] dan perkembangan selanjutnya dalam bidang ini mungkin tidak lama lagi.
Walaupun hubungan antara dinamik dan fungsi ER belum difahami, dinamik ER yang tidak normal baru-baru ini dikaitkan dengan beberapa penyakit [8,28,29], menunjukkan bahawa dinamik mungkin sangat penting. Sebaliknya, mutasi yang berkaitan dengan penyakit inmorfologi yang mengawal selia protein agak lebih difahami dan hubungan antara morfologi dan fungsi telah ditubuhkan [30,31].
Kajian ini akan memperincikan pemahaman semasa tentang morfologi, dinamik, dan fungsi ER dan interaksi antara mereka, serta penyakit yang dikaitkan dengan keabnormalan inmorfologi dan dinamik, memfokuskan terutamanya pada ER dalam sel vertebrata. Bahagian 2 akan menerangkan morfologi ER, protein yang terlibat dalam mengekalkan struktur ER normal, dan hubungan antara morfologi dan fungsi yang telah dijelaskan.
Bahagian 3 akan menerangkan dinamik ER, faktor yang menyebabkan pergerakan organel, usaha semasa untuk mengukur dinamik, dan perkembangan terkini dalam analisis dan pemodelan pengiraan.
Akhir sekali, Bahagian 4 akan memperincikan hubungan yang diketahui antara struktur/gerakan ER dan penyakit serta protein yang terlibat dalam penyakit ini. Perbincangan tentang organisasi subdomain THEER khususnya dalam sel neuron dibentangkan dalam artikel lain isu khas ini [32].
2. Morfologi

Dwilapisan lipid membatasi lumen ER. Dwilapisan ini dibentuk menjadi kepingan dan tubul berdiameter kira-kira 80–100 nm [25,33,34], dengan julat ~50–100 nm [33], yang disambungkan pada simpang untuk membentuk rangkaian retikular.
Tubul adalah kira-kira 1 µm dalam purata panjang dan bersambung di persimpangan, biasanya menyertai 3 tubul [27,35]. Lembarannya rata, dengan pemisahan dwilapisan 30–50 nm [33], dan selalunya berlaku dalam konfigurasi bertindan dengan tanjakan heliks yang menghubungkan lapisan [36].
Ketumpatan helaian biasanya lebih tinggi berhampiran pusat sel (cth, [33,37,38]), di mana retikulum endoplasma juga termasuk sampul nuklear; walau bagaimanapun, kawasan seperti lembaran juga berlaku di ER persisian.
Mikroskopi cahaya resolusi super telah mendedahkan bahawa sesetengah struktur persisian yang pada asalnya dianggap sebagai lembaran terdiri daripada matriks tubul yang padat [33,34,38], manakala yang lain terdiri daripada lembaran yang difenestrasi dengan lubang kecil (nanoholes: [33]).
Penyelidikan ke dalam protein yang terlibat dalam membentuk membran ER adalah meluas dan telah disemak baru-baru ini [30,31,39]. Morfologi kompleks ER baru-baru ini dikaitkan dengan fungsinya (disemak dalam [40]) dan boleh diubah sebagai tindak balas kepada keperluan metabolik yang diubah atau peringkat kitaran sel, seperti yang diterangkan kemudian.
2.1. Protein Pengatur Morfologi
Sebilangan besar protein terlibat dalam mengawal morfologi ER. Protein ini menstabilkan kawasan kelengkungan membran yang tinggi, menggalakkan percantuman membran, mengekalkan persimpangan tiga hala, mengawal ketebalan dan kerataan kepingan, dan menambat ER kepada mikrotubul (Rajah 1).
ER, tubul, dan tepi kepingan adalah kawasan kelengkungan membran yang tinggi. Keluarga protein REEP dan reticulon seperti jepit rambut menggalakkan kelengkungan pada permukaan ER untuk menstabilkan tubul dan tepi kepingan [2,3].
Reticulon 4 juga terkumpul di tepi nanooles, yang tiada dalam sel kalah mati Rtn4 [33]. Protein ini dianggap duduk dengan hujung 'jepit rambut' yang lebih luas di pinggir luar membran untuk menggalakkan kelengkungan melalui pengikatan hidrofobik, seperti yang ditunjukkan dalam Rajah 1C. Percantuman membran juga penting untuk mengekalkan morfologi ER yang betul. Atlastin, GTPase pemastautin anER, diperlukan untuk penyelenggaraan rangkaian ER dan gabungan membran [4-6].
Tubul baru yang ditarik keluar daripada struktur membran sedia ada mesti dicantumkan ke rangkaian untuk mengekalkan morfologi ER yang normal. Bian et al. mencadangkan bahawa atlastin adalah bermastautin dalam membran kedua-dua tepi penyatuan dan dimer terbentuk di antara kedua-dua protein [41] (lihat Rajah 1F). Dimerisasi ini akan menyebabkan perubahan konformasi di mana protein, dan oleh itu membran ER, akan ditarik lebih rapat, akhirnya menyebabkan pelakuran membran.
Dua RabGTPases, Rab10 [7], dan Rab18 [8] juga telah terlibat dalam gabungan tubul ER. Kekurangan salah satu daripada protein ini menyebabkan peningkatan dalam kepingan dan penurunan dalam tubul.
Rab10 juga menyetempat ke hujung tumbuh tubul ER yang diperkaya dalam dua enzim sintesis lipid: phosphoinositolsynthase (PIS) dan CEPT1 [7]. Menariknya, protein berkaitan dinamin 1 (Drp1), protein yang diperlukan untuk pembelahan mitokondria, telah ditunjukkan untuk menggalakkan pembentukan tubul ER secara bebas daripada Rtn4 [42].
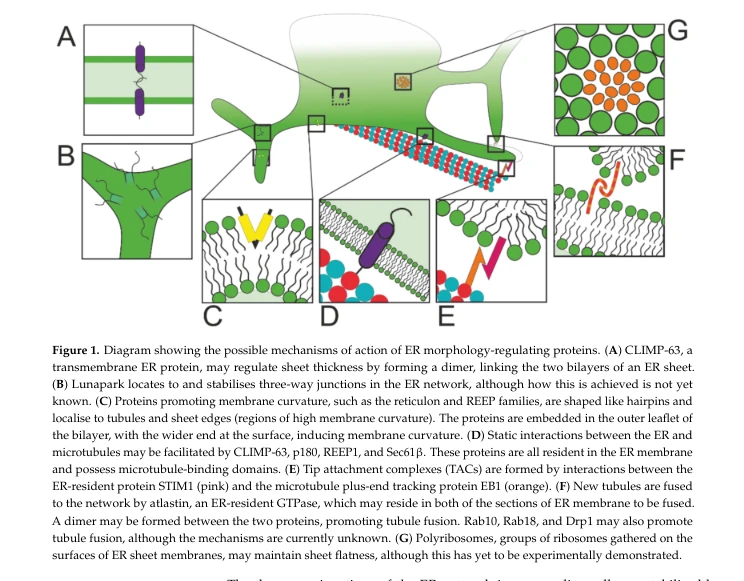
Persimpangan tiga hala rangkaian ER dalam sel mamalia distabilkan oleh mamalia Lnp1, ahli keluarga Lunapark [9-11]. mLnp1 menyetempatkan kepada persimpangan tiga hala dalam sel Cos-7 dan persimpangan yang kekurangan mLnp1 jauh lebih dinamik dan jangka hayat lebih pendek daripada persimpangan mLnp1-yang diperkaya [10].
Persimpangan bebas Lunapark kerap hilang melalui penutupan gelang, di mana persimpangan menggelongsor di sepanjang tubul jiran sehingga mereka bergabung dengan persimpangan lain, manakala penutupan gelang adalah kurang biasa dalam bentuk persimpangan Lnp1 [10].
Oleh itu, Lunapark menstabilkan persimpangan tiga hala dalam rangkaian. Kerjasama protein ini adalah penting dalam peraturan morfologi ER. Untuk mengekalkan morfologi ER normal, keseimbangan antara reticulon 4a dan ekspresi atlastin diperlukan [6]. Tubul yang panjang dan tidak bercabang dilihat dalam sel dengan sedikit fungsi atlastin dan dalam sel yang mengekspresikan reticulon 4a secara berlebihan.
Kedua-dua ekspresi atlastin dan reticulon 4a dalam sel kalah mati Lunapark memulihkan morfologi rangkaian normal di pinggir sel. Dalam yis, keseimbangan antara Lunapark Lnp1p dan homolog atlastin Sey1p diperlukan untuk pembentukan rangkaian poligon biasa [9]. Lunapark dan atlastin juga berkoordinasi untuk membentuk persimpangan tiga hala dalam sel mamalia, dengan Lunapark tidak dapat menyetempatkan persimpangan apabila atlastin dipadamkan [18].
Menggunakan pendekatan yang berbeza tetapi saling melengkapi, Shemesh et al. memodelkan rangkaian ER, memfokuskan pada dua kelas protein pengawal selia morfologi [43], dengan Lunapark dicadangkan sebagai protein yang mendorong kelengkungan negatif dan retikulon yang meningkatkan tepi lurus. Mengubah tahap ekspresi sel Lunapark inCos-7 menghasilkan morfologi ER yang berbeza, dan pelbagai sifat rangkaian seperti jumlah panjang dan bentuk persimpangan pilihan telah direplikasi dengan menukar kepekatan protein dalam simulasi.
Kepekatan relatif protein pengawalselia ERmorfologi adalah sangat penting untuk struktur ER biasa. CLIMP-63, protein membran integral, telah dicadangkan sebagai mekanisme untuk mengawal pemisahan lumen antara dua membran helaian ER [12– 14]. Seperti yang ditunjukkan dalam Rajah 1A, domain gegelung bergelung besarnya terletak dalam lumen ER dan telah dihipotesiskan untuk mengikat domain gegelung bergelung protein CLIMP-63 lain untuk mengawal ketebalan kepingan [12]. Ekspresi berlebihan CLIMP-63 mendorong pembentukan helaian yang mengandungi nanooles [33].

Faktor kedua yang mempengaruhi ketebalan kepingan mungkin kumpulan ribosom, juga dipanggil poliribosom, terikat pada muka sitosol THEER [44] (lihat Rajah 1G). Mengeluarkan ribosom dari permukaan ER ditukar helaian totubul, menyokong hipotesis bahawa poliribosom menstabilkan helaian ER [45]. p180 andkinectin, dua protein yang serupa dalam bentuk kepada CLIMP-63, mungkin memainkan peranan menggembungkan permukaan helaian [13], walaupun terdapat sedikit bukti muktamad yang menyokong idea ini. Kedua-dua protein ialah reseptor yang berpotensi untuk kinesin motor mikrotubulus-1 (lihat Bahagian 3.1.1).
Mikrotubul dan sitoskeleton aktin memainkan peranan utama dalam mengawal ER kedudukan dan morfologi, kedua-duanya melalui pautan dinamik dan statik (Rajah 1D, E), seperti yang dibincangkan dalam Bahagian 3. Bersama-sama, protein yang terlibat dalam pengikatan dan motilitas sitoskeletal, penstabilan kelengkungan membran, gabungan tubul, penyelenggaraan simpang, dan peraturan ketebalan kepingan adalah penting untuk penyelenggaraan struktur ER biasa.
For more information:1950477648nn@gmail.com