

Dalam Reka Bentuk Siliko Vaksin Multi-epitope Chimeric Promiscuous Terhadap Mycobacterium Tuberculosis Bahagian 2
Jul 13, 2023
2.15. Gambaran keseluruhan reka bentuk vaksin berbilang epitope
Rajah 1 meringkaskan konsep keseluruhan reka bentuk vaksin berbilang epitope ini. Secara ringkas, kami menganalisis antigenisiti protein M. tuberkulosis yang diperoleh daripada IEDB dan memilih lapan calon antigen untuk pembinaan vaksin berbilang epitope, dengan mengambil kira klasifikasi fungsian dan penyetempatan subselularnya. Kemudian, kami meramalkan epitop antigen bagi lapan protein ini dan memilih 15 epitop CTL, 16 epitop HTL, dan 10 epitop sel B, yang selanjutnya dikaitkan dengan adjuvant HBHA dan PADRE melalui penyambung yang sesuai. Tambahan pula, kami meramalkan antigenik, alergenik, sifat fizikokimia dan profil imunogenik bagi vaksin berbilang epitope yang direka bentuk. Sementara itu, kami juga meramalkan struktur sekunder dan tertiari vaksin dan menganalisis potensi interaksinya dengan reseptor imun TLR4.
Mycobacterium tuberculosis adalah patogen biasa yang menyebabkan tuberkulosis. Protein Mycobacterium tuberculosis adalah salah satu komponen utama Mycobacterium tuberculosis, yang sangat kritikal untuk fungsi sistem imun manusia.
Protein Mycobacterium tuberculosis boleh mengaktifkan sistem imun manusia dan meningkatkan imuniti badan. Apabila badan dijangkiti oleh Mycobacterium tuberculosis, sistem imun manusia akan menghasilkan satu siri tindak balas imun, termasuk pengaktifan dan percambahan sel T dan sel B tertentu. Sel-sel ini boleh melepaskan pelbagai faktor imun, seperti interferon, interleukin, dan lain-lain, serta antibodi untuk membantu badan menentang Mycobacterium tuberculosis yang menyerang.
Selain itu, protein Mycobacterium tuberculosis juga boleh mengawal keseimbangan sistem imun dan mengelakkan kerosakan imun yang disebabkan oleh pengaktifan tindak balas imun badan yang berlebihan. Dalam beberapa tahun kebelakangan ini, penyelidikan dan pembangunan vaksin tuberkulosis juga tertumpu terutamanya pada penggunaan protein Mycobacterium tuberculosis, yang boleh meningkatkan imuniti sistem imun manusia melalui vaksinasi dan berkesan mencegah kejadian dan penyebaran tuberkulosis.
Oleh itu, protein Mycobacterium tuberculosis sangat penting untuk kesan imuniti manusia. Dengan secara aktif menguatkan sistem imun, melalui senaman yang betul dan pemakanan yang munasabah, anda boleh mencegah batuk kering dan penyakit berjangkit lain dengan lebih baik dan mengekalkan kesihatan yang baik. Dari sudut ini, kita perlu meningkatkan imuniti kita. Cistanche boleh meningkatkan imuniti dengan ketara kerana polisakarida dalam daging boleh mengawal tindak balas imun sistem imun manusia, meningkatkan keupayaan tekanan sel imun, dan meningkatkan imuniti sel imun. Kesan bakteria.

Klik suplemen cistanche deserticola
3. Keputusan
3.1. Pengambilan semula protein M. tuberkulosis untuk pembinaan vaksin berbilang epitope
Untuk membina vaksin berbilang epitope terhadap TB, kami mula-mula menganalisis antigenisiti protein dalam M. tuberculosis H37Rv. Sebanyak 492 protein dengan sifat imunologi yang disahkan telah diperolehi daripada pangkalan data IEDB, di mana 402 protein (81.70 peratus ) diramalkan sebagai antigen. Untuk pencirian fungsi 492 protein ini, 353 telah diperkaya dalam pangkalan data DAVID, manakala 139 tidak. Analisis penyetempatan menunjukkan bahawa 97 daripada 353 protein yang diperkaya telah disetempatkan dalam petak ekstraselular, ruang di luar permukaan sel. Protein yang dilokalkan dalam petak ekstraselular termasuk protein membran luar dan protein yang dirembeskan.
Antara 97 protein, 49 adalah protein rembesan. Pengayaan lanjut 49 protein yang dirembeskan mendedahkan bahawa lima protein telah dirembeskan ke ruang ekstraselular dan lima diperlukan untuk patogenesis (disahkan secara eksperimen oleh BioCyc) [48]. Lebih-lebih lagi, apabila sepuluh protein ini diselaraskan dengan jumlah protein H. sapiens, dua protein (Mpt83 dan Mpt70) sangat serupa dengan protein H. sapiens. Oleh itu, baki lapan protein yang tidak serupa dengan protein H. sapiens (Jadual 1) dianggap sebagai calon akhir untuk pembinaan vaksin berbilang epitope.
3.2. Ramalan epitop sel T dan sel B bagi protein calon
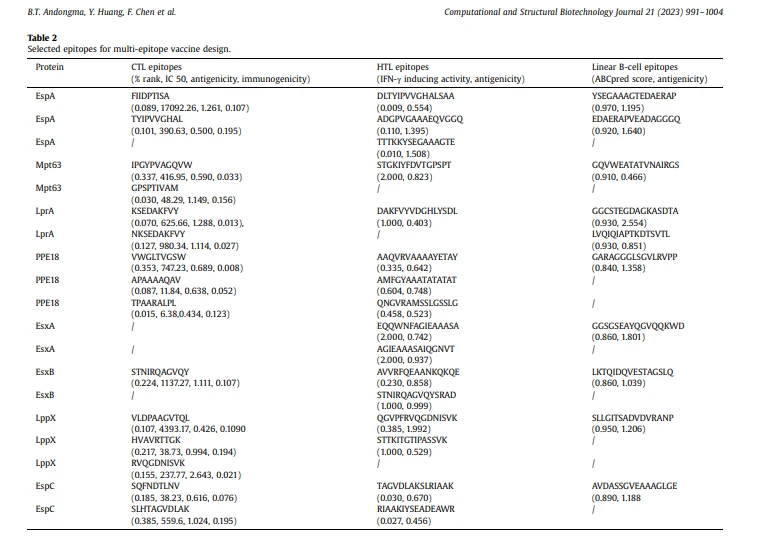
Sebelum ramalan epitope, peptida isyarat telah dikenal pasti dan dipadamkan daripada protein calon. Sebanyak 623 epitop CTL daripada lapan protein calon dengan 135 pengikat kuat (16 daripada A1, 40 daripada A2, 22 daripada A3, 19 daripada A24 dan 38 daripada superjenis B7 bagi MHC kelas I) telah diramalkan oleh NetMHCpan{{12} }.1 pelayan (Gamb. 2A, B). Antara 135 pengikat kuat, 36 adalah kedua-dua antigen dan imunogenik. Akhir sekali, kami memilih 15 daripada 36 epitop CTL mengikut kriteria berikut: tiga epitop setiap superjenis dan sekurang-kurangnya satu setiap protein calon (Nota: EsxA tidak mempunyai pengikat kuat yang bersifat antigen dan imunogenik) (Jadual 2).
Selain itu, kami meramalkan epitop HTL mereka (epitop kelas II MHC). {{0}}epitop daripada empat alel (HLA_DRB, HLA_DP, HLA_DQ dan H-2-I) dengan kedudukan peratusan Kurang daripada atau sama dengan 2.0 dianggap sebagai pengikat yang kuat dan diberi kedudukan daripada skor terendah hingga tertinggi. Alel HLA-DR mempunyai bilangan pengikat MHC II tertinggi (2990), manakala HLA-DP mempunyai paling sedikit (601) (Rajah 2C, D). Perlu diingatkan bahawa tindak balas imun dalam gangguan granulomatous seperti batuk kering, kusta dan sarcoidosis didominasi oleh sel T-helper-1 (Th1) penghasil IFN [97]. Di samping itu, laporan terdahulu mendedahkan bahawa ekspresi sitokin Th1 (IFN- dan IL2) menurun pada pesakit tuberkulosis [98]. Oleh itu, untuk merangsang sel Th1, kami meramalkan 15-mer IFN- -mendorong peptida protein ini. Sebanyak 534 epitop dengan aktiviti mendorong IFN telah diramalkan menggunakan NetMHCIIpan 4.0, di mana 315 epitop adalah antigenik. Daripada 315 epitop ini, 103 menunjukkan aktiviti mengikat yang kuat kepada sekurang-kurangnya satu alel HLA.
Juga, polimorfisme dalam alel HLA menghasilkan variasi alel, yang membawa kepada kekhususan pengikat peptida yang berbeza secara meluas [55]. Akibatnya, kami memilih satu epitope dengan aktiviti pengikatan terkuat (epitop paling rambang) daripada setiap lapan protein calon. Di samping itu, baki 95 epitop telah disenaraikan berdasarkan kekuatan pengikatan, dan kemudian lapan epitop tambahan telah dipilih, dengan maksimum dua epitop bagi setiap protein calon. Akhir sekali, kami memilih 16 daripada 103 epitop HTL mengikut kriteria berikut: sekurang-kurangnya satu epitop dan maksimum tiga epitop bagi setiap protein calon, aktiviti pengikatan terkuat bagi setiap protein calon, dan kebanyakan antigenik dan mendorong IFN. Kami kemudian menggunakannya untuk membina vaksin berbilang epitope ini (Jadual 2).
Bagi ramalan epitop sel B linear, dua pelayan (BepiPred2.0 dan ABCpred) telah digunakan dan 166 epitop telah diperoleh. Kami meramalkan antigenik lima epitop teratas untuk setiap protein dan kemudian memilih sepuluh epitop antigen (16-mer, sekurang-kurangnya satu daripada setiap protein calon) (Jadual 2).
3.3. Pembinaan vaksin berbilang epitope
Untuk pembinaan vaksin berbilang epitope, HBHA, PADRE, 16 HTL (15-mer), 15 CTL dan 10 epitop sel B linear (16-}mer) telah disambungkan melalui penghubung yang sesuai dan diekor oleh His tag × 6 (Gamb. 3). Adjuvant adalah komponen penting vaksin yang boleh meningkatkan tindak balas imun semula jadi dan adaptif [99]. Banyak protein daripada M. tuberculosis mempunyai sifat adjuvant dan telah digunakan untuk mereka bentuk vaksin [17,27,87,100–105]. Salah satu yang paling banyak digunakan ialah HBHA [100-105], yang merupakan imunostimulan kuat yang mendorong kematangan sel dendritik (DC) melalui pemprosesan TLR4 [105,106]. DC yang dirawat dengan HBHA telah didapati mengaktifkan sel T naif, mempolarisasi sel CD4 plus dan CD8 plus T untuk merembeskan IFN- dan mendorong sitotoksisiti pengantaraan sel T [47].
Dalam kajian ini, kami meletakkan HBHA sebagai adjuvant protein pada terminal-N kerana ia sesuai untuk memulakan sintesis binaan vaksin daripada HBHA, protein yang wujud secara semula jadi. HBHA sebelum ini telah diletakkan di terminal N beberapa vaksin multiepitope sebagai adjuvant [105,107]. Sebagai tambahan kepada adjuvant, PADRE, yang selamat untuk manusia, boleh meningkatkan imunogenisiti vaksin dengan ketara kerana ia mengikat dengan pertalian tinggi kepada pelbagai tetikus dan alel MHC-II manusia dengan pertalian tinggi untuk mendorong tindak balas pengantaraan sel Th [47,62]. HBHA dan PADRE disambungkan oleh penyambung PEAK heliks, yang memberikan ketegaran sambil mengasingkan dua komponen protein untuk meningkatkan kecekapan dan mengurangkan gangguan. Selanjutnya, jambatan garam Glu-Lys yang terbentuk dalam segmen menstabilkan penghubung.

Memandangkan PADRE boleh meningkatkan aktiviti epitop HTL vaksin [54], kami meletakkan 16 epitop HTL selepas PADRE. Penyambung GPGPG digunakan untuk menghubungkan epitop HTL antara satu sama lain dan kepada PADRE kerana ia memudahkan perkembangan sel imun dan pembentangan epitop [108,109]. Selain itu, GPGPG mendorong tindak balas imun HTL, yang boleh mengganggu imunogenisiti persimpangan dan memulihkan imunogenisiti epitop individu selepas pemprosesan [108].
Untuk 15 epitop CTL, epitop individu telah disertai oleh penyambung AAY, yang membantu epitop menghasilkan tapak yang sesuai untuk mengikat pada pengangkut TAP dan meningkatkan persembahan epitop [47]. Selanjutnya, keseluruhan subunit epitop CTL telah dipautkan kepada epitop HTL hulu melalui pemaut HEYGAEALERAG yang mempunyai lima tapak belahan yang sesuai (A7-L8, A5-E6, Y3-G4, R 10-A11, dan L8-E9) penting untuk sistem degradasi proteasomal dan lisosom eukariotik. Dalam eukariota, proteasom dan lisosom adalah jentera proteolitik yang paling penting, yang masing-masing menggunakan sistem ubiquitin-proteasome (UPS) dan autophagy [110].
Penyambung HEYGAEALERAG juga digunakan untuk memautkan subunit epitop CTL kepada 10 epitop sel B linear hiliran yang dipautkan bersama oleh penyambung KK. Menurut kajian terdahulu, penghubung KK menghalang induksi antibodi ke dalam urutan asid amino yang terhasil daripada gabungan dua peptida, dengan itu memudahkan paparan khusus setiap peptida kepada antibodi [111]. Akhirnya, tag His× 6 telah dilekatkan pada terminal C epitop sel B linear terakhir untuk penulenan dan pencirian vaksin berikutnya (Rajah 3).
Protein chimeric akhir terdiri daripada 933 sisa asid amino, bermula dengan adjuvant HBHA, diikuti dengan 41 epitop, dan berakhir dengan tag His× 6 (Rajah 3). Oleh kerana protein chimeric ini terdiri daripada antigen berbilang epitope daripada lapan protein, kami menamakannya MTBV8, Vaksin TB Multi-epitope yang diperoleh daripada 8 protein calon.
3.4. Analisis parameter antigen, alergenik dan fisiokimia MTBV8
Kajian terdahulu telah menunjukkan bahawa antigenicity diperlukan untuk vaksin manusia untuk menimbulkan tindak balas imun humoral, yang membawa kepada penjanaan sel memori yang diarahkan terhadap epitop agen berjangkit [112]. Oleh itu, kami meramalkan antigenik bagi vaksin berbilang epitope MTBV8 menggunakan pelayan VaxiJen 2.0 dan memperoleh antigenik 0.97, yang jauh lebih tinggi daripada nilai ambang ({{7} }.4) [45,46] untuk protein bakteria dianggap antigenik. Terutama, MTBV8 adalah lebih antigenik daripada semua protein komponen (Rajah 4), menunjukkan bahawa ia boleh merangsang tindak balas imun perumah dengan berkesan
Selain itu, banyak makromolekul mikrob telah dilaporkan mempunyai potensi untuk mendorong tindak balas hipersensitiviti pada manusia [113]. Untuk menganalisis isu hipersensitiviti MTBV8 dan lapan protein konstituen, kami meramalkan alergeniknya menggunakan pelayan AllerTOP 2.0. Dua daripada lapan komponen protein (LprA dan EspC) diramalkan sebagai alergen (Jadual 1). Perlu diingat bahawa walaupun vaksin multi-epitope (MTBV8) yang direka bentuk mengandungi sepuluh epitop yang diperoleh daripada kedua-dua protein ini, ia diramalkan tidak alergik, menunjukkan bahawa vaksin ini selamat.
Untuk mencirikan lagi MTBV8, kami menganalisis sifat fizikokimianya melalui pelayan ExPASy ProtParam. Protein rekombinan mempunyai berat molekul 94.84 kDa dan titik isoelektrik 8.91. Selain itu, protein dianggap stabil dengan indeks ketidakstabilan yang dikira (II) sebanyak 26.44 (protein dengan indeks ketidakstabilan > 4{16}} dianggap tidak stabil) [64]. Anggaran separuh hayat in vitro ialah 3{19}} h dalam retikulosit mamalia, lebih lama daripada in vivo 20 h dalam yis dan dalam vivo 10 h dalam E. coli. Di samping itu, indeks alifatik MTBV8 ialah 71.91, dan nilai purata keseluruhan hidrofilik (GRAVY) ialah -0.32, menunjukkan bahawa protein rekombinan adalah hidrofilik. Akhir sekali, nilai keterlarutan berkadar untuk MTBV8 (0.54) adalah lebih besar daripada purata bagi kumpulan data populasi (0.45), menunjukkan bahawa calon vaksin lebih larut daripada separuh daripada protein E. coli [114]. Keputusan di atas menunjukkan bahawa MTBV8 mempunyai sifat fizikal dan kimia yang baik dan sesuai digunakan sebagai vaksin.

3.5. Profil imunogenik MTBV8
Untuk menilai profil imunogenisiti MTBV8, kami menganalisis tindak balas imun dalam silico melalui pelayan imun C-IMMSIM. Seperti yang ditunjukkan dalam Rajah 5A, titer IgM dan IgG1 telah meningkat dengan ketara selepas rangsangan imun sekunder oleh MTBV8. Selain itu, tahap sel B aktif meningkat dan kekal pada tahap yang tinggi selepas setiap imunisasi (Rajah 5B). Walaupun untuk sel B dalam plasma, isotip B IgM dan IgG1 kekal tinggi selepas imunisasi (Tambahan Rajah 1A, B). Bagi kesan ke atas sel T, tahap sel memori Th (y2) (Tambahan Rajah 1C) dan sel Th aktif (Rajah 5C) meningkat dengan cepat selepas imunisasi primer dan meningkat dengan ketara selepas imunisasi sekunder. Sel T pengawalseliaan (terutamanya sel aktif) telah dirangsang semasa imunisasi awal dan kemudian menurun dengan cepat (Tambahan Rajah 1D). Menariknya, tahap sel T (Tc) sitotoksik aktif meningkat dengan cepat selepas imunisasi primer, kekal tinggi dalam imunisasi kedua, dan kemudian menurun secara berterusan, manakala sel Tc yang berehat menunjukkan arah aliran terbalik kepada sel Tc aktif (Rajah 5D). Sebaliknya, tahap sel Tc anergik (y2) (Rajah 5D) dan sel Tc memori (Tambahan Rajah 1E) kekal tidak berubah selepas imunisasi. Di samping itu, perlu diingatkan bahawa tahap faktor imun IFN- dan IL-2 dirembeskan oleh sel T yang penting untuk tindak balas imun terhadap M. tuberkulosis [115] juga meningkat dengan ketara selepas imunisasi MTBV8 (Rajah. 5E).
Tambahan pula, kami meramalkan kesan vaksinasi MTBV8 ke atas populasi sel imun semula jadi (Rajah 5F dan Rajah Tambahan 1FH). Membentangkan-2 sel dalam DC dan makrofaj meningkat dengan cepat selepas imunisasi pertama, manakala hanya peningkatan kecil diperhatikan selepas imunisasi kedua (Rajah 5F dan Rajah Tambahan 1G). Di samping itu, dalam makrofaj, imunisasi pertama menghasilkan peningkatan atau penurunan serentak dalam makrofaj aktif dan berehat. Beberapa minggu selepas imunisasi kedua, makrofaj aktif berkurangan dengan cepat manakala makrofaj berehat meningkat dengan cepat. (Tambahan Rajah 1G). Terutama, sel pembunuh semulajadi dan populasi sel epitelium aktif menunjukkan corak yang agak berterusan semasa imunisasi. (Tambahan Rajah 1F, H). Secara keseluruhan, ramalan ini mencadangkan bahawa MTBV8 boleh merangsang kedua-dua tindak balas imun semula jadi dan adaptif, menjadikannya calon vaksin yang berpotensi berkesan.
3.6. Meramalkan struktur menengah dan tertiari MTBV8
Untuk mencirikan MTBV8 dengan lebih baik, kami meramalkan struktur sekunder dan tertiarinya, diikuti dengan menapis struktur tertiernya. Struktur sekunder MTBV8 terdiri daripada 42.12 peratus heliks, 11.79 peratus helai dan 46.09 peratus gegelung (Tambahan Rajah 2). Menurut ramalan DISOPRED3, 27.11 peratus sisa asid amino tidak teratur.
Struktur tertier MTBV8 telah diramalkan oleh pelayan I-TASSER, dan 5 model dengan skor C yang baik diperolehi. Skor C adalah antara −5.0 dan 2.0 dan adalah berkadar dengan kebolehpercayaan ramalan. Model-model ini tertakluk kepada analisis web ProSA dan model 4 dipilih kerana ciri-ciri berikut; Skor C=−3.8, skor Z=−4.4. Analisis plot Ramachandran bagi struktur tertiari ini menunjukkan bahawa kurang daripada 70.0 peratus daripada sisa berada di kawasan pilihan, oleh itu, penghalusan lanjut struktur tertiari diperlukan.
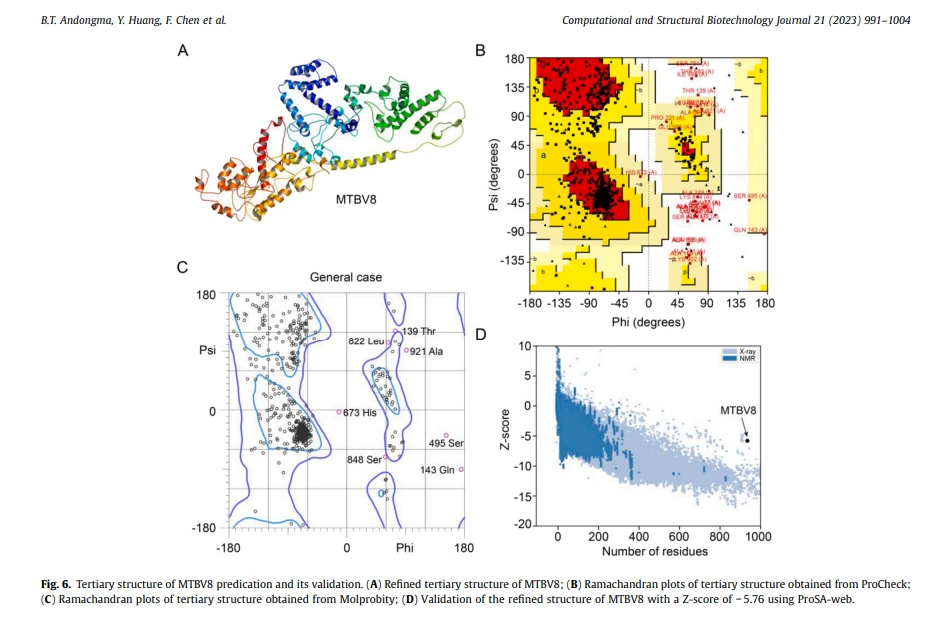
Struktur tertier yang diperolehi oleh I-TASSER telah diperhalusi oleh pelayan ModRefiner, diikuti oleh pelayan GalaxyRefine untuk menjana lima model. Antara lima model yang diperhalusi, model 2 mempunyai struktur terbaik apabila mempertimbangkan parameter berikut: Ujian jarak global ketepatan tinggi (0.89), RMSD (0.58), MolProbity (2.31), pertembungan skor (14.8), skor pemutar yang lemah ({{10}}}.80) dan skor plot Ramachandran (86.5 peratus ) (Gamb. 6A). Analisis plot Ramachandran terhadap struktur ini menggunakan PROCHECK mendedahkan bahawa daripada 753 sisa bukan glisin, bukan prolin dan bukan terminal, 78.9 peratus daripadanya berada di kawasan yang paling menguntungkan [A, B, L], 17.3 peratus berada dalam kawasan tambahan yang dibenarkan [a, b, l, p], dan 1.5 peratus dalam wilayah yang dibenarkan secara amnya [∼a, ∼b, ∼l, ∼p], dengan hanya 2.4 peratus di wilayah yang tidak dibenarkan (Rajah 6B). Apabila menganalisis plot Ramachandran bagi struktur yang ditapis menggunakan Molprobity, kami mendapati bahawa 86.5 peratus daripada sisa asid amino terletak di kawasan yang menguntungkan, yang sama seperti yang diperolehi oleh pelayan GalaxyRefine (Rajah 6C) . Tambahan pula, 98.0 peratus daripada residu berada di kawasan yang dibenarkan, manakala 19 residu adalah outlier (phi, psi) (Rajah 6C). Walaupun model yang ditapis mempunyai lebih banyak sisa di rantau yang digemari berbanding model yang dihasilkan oleh I-TASSER, ia memerlukan pengesahan lanjut.
Pengesahan model ialah langkah utama dalam proses pembinaan model kerana ia boleh mengenal pasti ralat yang berpotensi dalam model 3D yang diramalkan [116]. Untuk mengesahkan analisis model MTBV8, ProSA-web dan ERRAT yang diperhalusi telah dilakukan. Analisis web ProSA menunjukkan skor Z - 5.76 untuk MTBV8 (Rajah 6D), yang berada di luar sedikit daripada julat skor yang ditentukan secara eksperimen untuk protein yang mempunyai saiz yang sama. Walau bagaimanapun, analisis ERRAT menunjukkan faktor kualiti keseluruhan 70.94 untuk MTBV8 yang ditapis. Oleh kerana skor ERRAT lebih daripada 50 mewakili model kualiti yang baik [117], skor 70.94 menunjukkan bahawa kami mempunyai keyakinan tinggi dalam struktur model untuk analisis seterusnya.
3.7. Docking molekul MTBV8 dengan reseptor sel imun
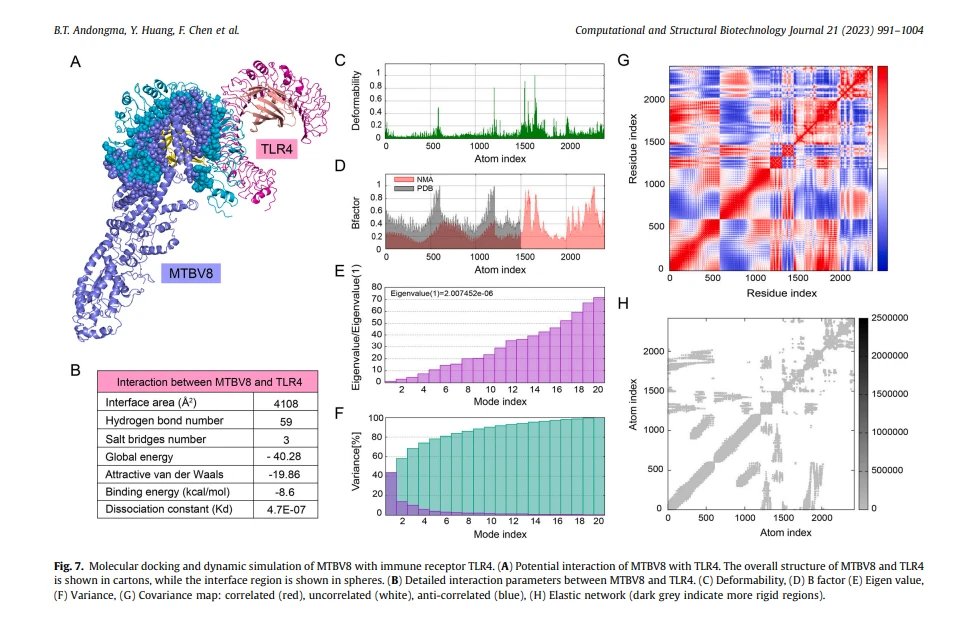
Pertalian kuat vaksin untuk reseptor sel imun menghasilkan tindak balas imun yang stabil [118]. Untuk mendapatkan gambaran tentang potensi interaksi antara MTBV8 dan reseptor sel imun, kami menjalankan dok molekul antara MTBV8 dan reseptor imun TLR4 (Rajah 7A dan B). Kajian terdahulu telah menunjukkan bahawa ligan TLR4 boleh mengaktifkan DC, yang seterusnya mengaktifkan sel T naif, secara berkesan mempolarisasi sel T (sel CD4 tambah dan CD8 tambah) untuk merembeskan IFN- dan mendorong sitotoksisiti pengantaraan sel T [106]. Proses ini akan membawa kepada peningkatan dalam kumpulan sel memori effector [119]. Memandangkan interaksi TLR4 dengan peptida antigenik membawa kepada tindak balas terhadap jangkitan TB, kami memberi tumpuan kepada interaksi antara MTBV8 dan TLR4 (Rajah 7A). Hasil dok molekul daripada Firedock menunjukkan bahawa model ditapis yang paling digemari mempunyai tenaga global -40.28, tenaga van der Waals (aVdW) yang menarik sebanyak -19.86, tenaga tolakan (merah) 2.19, tenaga sentuhan atom daripada 4.70 dan sumbangan ikatan hidrogen (HB) sebanyak - 1.03 (Rajah 7B). Selain itu, Prodigy meramalkan tenaga mengikat antara TLR4 dan MTBV8 sebanyak -8.6 kcal/mol. Keputusan di atas menunjukkan bahawa MTBV8 mempunyai pertalian yang kuat dengan TLR4, membolehkannya menjana tindak balas imun yang stabil.

3.8. Simulasi dinamik molekul
Simulasi dinamik molekul digunakan untuk menganalisis pergerakan atom dalam vaksin [120]. Kebolehubah bentuk rantai utama mendedahkan sejauh mana molekul boleh berubah bentuk pada setiap sisa konstituen. Kawasan ubah bentuk tinggi menunjukkan kedudukan "engsel" rantai (Rajah 7C), dan faktor B eksperimen diperoleh daripada bank data PDB yang sepadan manakala pengiraan dilakukan dengan mendarabkan mobiliti NMA dengan 8pi^2 (Rajah 7D ). Nilai eigen yang diberikan kepada setiap mod biasa ialah ukuran kekakuan gerakan, yang berkaitan secara langsung dengan tenaga ubah bentuk keseluruhan struktur. Nilai eigen adalah berkadar terus dengan kemudahan ubah bentuk (Rajah 7E). Varians setiap mod biasa adalah berkadar songsang dengan nilai eigen. Varians individu diwarnakan dalam coklat manakala varians kumulatif diwarnakan dalam hijau) (Rajah 7F). Dalam matriks kovarian, terdapat gandingan antara pasangan sisa, dan gerakan berkorelasi (merah), tidak berkorelasi (putih), dan anti-berkorelasi (biru) dipaparkan (Rajah 7G). Rangkaian keanjalan mewakili pasangan atom yang disambungkan oleh spring, dan setiap titik mewakili spring antara pasangan atom yang sepadan. Warna titik menandakan kekakuan mereka; titik kelabu yang lebih gelap menggambarkan spring yang lebih keras dan sebaliknya (Rajah 7H). Simulasi dinamik molekul menggunakan pelayan iMODS mencadangkan bahawa kompleks dok antara MTBV8 dan TLR4 adalah stabil.
3.9. Dalam pengoptimuman siliko dan pengklonan MTBV8
Sintesis protein adalah prasyarat untuk aktivitinya [121]. Selaras dengan ini, peningkatan kecekapan transkripsi dan translasi vaksin diperlukan untuk ekspresi berlebihan dalam sel E. coli melalui plasmid yang mereplikasi sendiri pET28a( tambah ) [103]. Pengoptimumannya dicapai oleh Indeks Penyesuaian Kodon (CAI) sebanyak 0.99, dan kandungan GC (54.81 peratus) antara 30 peratus dan 70 peratus, yang secara amnya dianggap sesuai untuk ekspresi protein dalam hos. Serpihan DNA mtbv8 boleh diklonkan menjadi vektor pET-28a( tambah ) antara tapak sekatan NcoI dan XhoI menggunakan SnapGene untuk menjana plasmid rekombinan pET-28a ( tambah )-mtbv8 (Tambahan Rajah .3).
4. Perbincangan
4.1. Kemunculan vaksin multi-epitope terhadap tuberkulosis
Vaksinasi adalah cara yang paling boleh dipercayai untuk melawan jangkitan tuberkulosis. Selama bertahun-tahun, saintis telah mengenal pasti banyak calon vaksin yang menjanjikan yang boleh menggantikan BCG, satu-satunya vaksin TB yang diluluskan [8100,122–125]. Baru-baru ini, vaksin TB rekombinan telah mendapat perhatian yang semakin meningkat. Beberapa vaksin rekombinan telah menunjukkan keberkesanan dalam ujian praklinikal dan klinikal, termasuk ID93/GLA-SE yang terdiri daripada empat calon vaksin Rv2608 (keluarga PE/PPE), Rv1813 (dinyatakan di bawah tekanan/hipoksia), ESXV dan ESXW, yang menjanjikan dalam percubaan pra-klinikal tikus [122]. Untuk ujian klinikal, GamTBvac, yang diperoleh dengan menggabungkan Ag85a dan ESAT6-CFP10, berjaya dalam ujian fasa I [125], manakala M72, yang terdiri daripada dua calon [Mtb39A (PPE18) dan Mtb32A], menghasilkan potensi yang ketara dalam fasa II percubaan [123].
Percubaan yang berjaya bagi vaksin rekombinan ini menunjukkan potensi vaksin berasaskan epitope yang lebih besar yang hanya menggabungkan sifat imunologi protein calon yang berbeza ke dalam protein sintetik [124]. Terutama, beberapa vaksin subunit TB telah diperoleh daripada sejumlah besar calon vaksin, dan mereka telah muncul sebagai calon yang berpotensi menarik dalam kajian model haiwan [100]. Sebagai contoh, MP3RT, calon vaksin TB peptida multiepitope yang terdiri daripada enam peptida HTL imunogenik, mendorong paras IFN- dan CD3 ditambah limfosit T IFN- dan CD3 serta unit pembentuk koloni yang lebih rendah (CFU) yang lebih tinggi dalam paru-paru dan limpa tikus yang dimanusiakan. tikus jenis liar [8]. Melangkah ke hadapan, penyelidikan untuk potensi yang lebih besar dalam vaksin ini telah membawa kepada pengayaan calon protein yang berpotensi.
Selanjutnya, protein yang dirembeskan oleh M. tuberculosis juga telah dipertimbangkan dalam reka bentuk MTBV8 (Jadual 1), kerana ia penting untuk patogenesis dan virulensi TB [126]. Di samping itu, beberapa protein yang dirembeskan dari lapisan luar sel M. tuberkulosis boleh berfungsi sebagai antigen yang berguna. Sebagai contoh, EsxA dan EsxB telah disucikan daripada kapsul M. tuberculosis [127] dan pengekalan EsxA dalam kapsul telah terlibat dalam sitotoksisiti [128]. Di samping itu, EsxA diperlukan untuk integriti dinding sel bakteria [129]. Secara keseluruhan, protein yang dirembeskan mempunyai permukaan yang cukup terdedah supaya ia menjadi sasaran tindak balas imun hos [130,131].
4.2. Potensi rangsangan sistem imun semula jadi oleh MTBV8
Pemeriksaan untuk epitope dalam protein calon melibatkan pengaktifan sistem imun semula jadi diikuti dengan pengecaman antigen oleh limfosit kerana kedua-dua faktor diperlukan untuk pengaktifan sistem imun adaptif berikutnya [50]. Untuk tindak balas semula jadi, pembentukan kompleks yang stabil antara MTBV8 (dibantu oleh perangsang TLR4 HBHA sebagai pembantu) dan TLR4 DC (Rajah 5F) adalah penting kerana ligan TLR4 boleh mengaktifkan DC dan DC yang diaktifkan boleh, seterusnya, mengaktifkan. sel T naif, secara berkesan mempolarisasi sel CD4 plus dan CD8 plus T untuk merembeskan IFN-, dan mendorong sitotoksisiti pengantaraan sel T [106] dan seterusnya meningkatkan kumpulan sel memori effector [119].
Kompleks ini berkemungkinan menyumbang kepada peningkatan populasi sel ingatan (y2) dalam limfosit B (Tambahan Rajah 1A) dan limfosit Th (Tambahan Rajah 1C) berbanding sel bukan ingatan. Rangsangan imun oleh MTBV8 adalah setanding dengan yang diperolehi dengan vaksin multiepitope lain terhadap TB [33,37,39] dan penyakit lain [27,62,107,124,132]. Ini membayangkan ketekalan mekanisme vaksin berbilang epitope.
4.3. Potensi rangsangan sistem imun adaptif oleh MTBV8
Limfosit B dan T ialah sel effector utama yang menyelaraskan tindak balas imun adaptif melalui imuniti humoral atau sel-mediated dengan mengenali bahagian patogen yang menyerang, dirujuk sebagai antigen [50]. Untuk mendorong tindak balas imun adaptif humoral, kami memasukkan epitop sel B skor tinggi (Jadual 2) untuk pengiktirafan dan pemusnahan oleh antibodi yang dinyatakan dan dirembeskan oleh limfosit B [50,133]. Rangsangan vaksin limfosit B aktif (Rajah 5B), kebanyakannya merembeskan sel B IgM- dan IgG1-(Tambahan Rajah 1A), boleh mengakibatkan rembesan IgM dan IgG1 yang berlebihan (Rajah 5A).
Antigenisiti tinggi vaksin (Rajah 4) mungkin mempunyai implikasi penting untuk meningkatkan tindak balas antibodi (Rajah 5A). Sesungguhnya, tindak balas imun yang dimediasi sel sangat bergantung kepada keupayaan sel T untuk mengenali antigen [134]. Untuk mencapai matlamat ini, kami memilih epitop CTL dan HTL antigenik dan kuat yang mengikat MHC yang kuat (Jadual 2), yang meningkatkan peptida: kestabilan kompleks MHC (pMHC), yang merupakan faktor utama yang mengawal imunogenisiti peptida MHC [135] dan memainkan peranan dalam penyebuan sel T CD8 tambah dan CD4 tambah oleh DC, yang membawa kepada tindak balas limfosit T (Rajah 5C, Rajah Tambahan 1C) [136].
Penggabungan penghubung yang sesuai dan oligopeptida sintetik (PADRE dan HEYGAEALERAG) dan kedudukan yang tepat bagi setiap komponen boleh memudahkan perarakan dan persembahan epitope (Rajah 3). Disebabkan oleh variasi alel di kalangan manusia, kami memilih epitop CTL berdasarkan pengiktirafan alel MHC-I kaum manusia utama Jadual Tambahan 1 (Jadual 2), dan epitop HTL rambang telah dipilih selepas pemeriksaan untuk sifat dan antigenisitas yang mendorong IFN.
4.4. Prospek pembangunan MTBV8
Reka bentuk vaksin dalam silico ini merupakan penunjuk yang relevan dalam fasa saringan dari segi sintesis dan keberkesanan vaksin calon. Untuk sintesis, ramalan kami mendedahkan bahawa ia boleh disintesis dalam sistem E. coli, walau bagaimanapun, sistem lain seperti sel serangga dan mamalia juga boleh dipertimbangkan jika sistem berasaskan E. coli mengalami kesukaran. Pengesahan makmal basah adalah peringkat seterusnya dalam mengesahkan calon vaksin selepas kajian silico. Kaedah ini sebenarnya telah digunakan dengan berkesan dalam beberapa calon vaksin, yang juga direka pertama dalam silico dan kemudiannya terbukti berkesan dalam fasa eksperimen [137].
5. Kesimpulan
Sokongan utama Matlamat Pembangunan Mampan WHO untuk pembasmian lengkap TB ialah akses kepada vaksin yang mujarab untuk mencegah jangkitan M. tuberkulosis. Kajian terdahulu telah menunjukkan bahawa vaksin multi-epitope chimeric boleh mengeksploitasi sifat imun/antigenik protein tertentu untuk meningkatkan keberkesanan imun. Dalam kajian ini, kami menggunakan pendekatan in silico untuk mereka bentuk vaksin chimeric (MTBV8) dengan menyepadukan 41 epitop rambang yang diperoleh daripada lapan protein antigen yang dirembeskan oleh M. tuberculosis H37Rv. MTBV8 diramalkan stabil, larut, selamat, sangat antigenik dan imunogenik.
Analisis imuno-informatik menunjukkan bahawa MTBV8 mempamerkan pertalian yang baik untuk reseptor sel imun utama TLR4. Yang penting, rangsangan vaksinasi MTBV8 boleh meningkatkan tahap sel B, sel T dan populasi sel imun semula jadi dengan ketara dan merangsang pengeluaran imunoglobulin (IgG1, IgM, dsb.) serta faktor imun (IFN- , IL{{6 }}, dan lain-lain). Secara keseluruhannya, vaksin multi-epitope MTBV8 ialah penunjuk yang relevan dalam fasa reka bentuk vaksin anti-TB dan mungkin menjadi asas yang berpotensi dalam merealisasikan 'Strategi The End TB'.
Penyata sumbangan pengarang kredit
Binda T. Andongma: Pengkonsepan, Metodologi, Perisian, Penulisan – draf asal. Yazheng Huang: Penyusunan data, Perisian. Fang Chen: Perisian, Visualisasi. Qing Tang: Penyusunan data, Analisis formal. Min Yang: Perisian, Visualisasi. Shan-Ho Chou: Menulis – menyemak & menyunting. Xinfeng Li: Pengkonsepan, Metodologi, Perisian, Pemerolehan Pembiayaan. Jin He: Penyeliaan, Penulisan – semakan & penyuntingan, Pemerolehan pembiayaan.
Pengisytiharan Kepentingan Bersaing
Penulis mengisytiharkan bahawa mereka tidak mempunyai kepentingan kewangan yang bersaing atau hubungan peribadi yang mungkin kelihatan mempengaruhi kerja yang dilaporkan dalam kertas kerja ini.

Ucapan terima kasih
Kerja ini disokong oleh Yayasan Sains Semula Jadi Kebangsaan China (32200026, 31900057), dana terbuka Makmal Utama Mikrobiologi Pertanian Negeri (AMLKF202108), dan Yayasan Sains Pasca Kedoktoran China (2019M662654).
Lampiran A. Maklumat sokongan
Data tambahan yang dikaitkan dengan artikel ini boleh didapati dalam versi dalam talian di doi:10.1016/j.csbj.2023.01.019.
Rujukan
[1] Boineau R, Domanski M, Troutman C, Anderson J, Johnson G, Mcnulty SE, Clappchanning N, Davidson-ray LD, Fraulo ES, Fishbein DP, et al. Amiodarone atau kardioverter-defibrilator yang boleh ditanam untuk kegagalan jantung kongestif. New Engl J Med 2005;352(3):225–37.
[2] Khoshnood S, Heidary M, Haeili M, Drancourt M, Darban-sarokhalil D, Nasiri MJ, Lohrasbi V. Calon vaksin novel terhadap Mycobacterium tuberculosis. Int J Biol Macromol 2018;120(Pt A):180–8.
[3] Kyu HH, Maddison ER, Henry NJ, Ledesma JR, Wiens KE, Reiner R, et al. Beban global, serantau dan nasional bagi tuberkulosis, 1990-2016: hasil daripada kajian beban global penyakit, kecederaan dan faktor risiko 2016. Lancet Infect Dis 2018;18(12):1329–49.
[4] Pertubuhan Kesihatan Sedunia (2022). Laporan Tuberkulosis Global. 〈https://www. WHO. int/penerbitan/i/item/9789240061729〉.
[5] Mirzayev F, Viney K, Linh NN, Gonzalez-Angulo L, Gegia M, Jaramillo E, Zignol M, Kasaeva T. Pengesyoran Pertubuhan Kesihatan Sedunia mengenai rawatan tuberkulosis tahan dadah, kemas kini 2020. Eur Respir J 2021;57(6):2003300.
[6] Ahmad Khan F, Fox G, Menzies D. Tuberkulosis tahan dadah. New York: Buku Panduan Springer Rintangan Antimikrob; 2017. hlm. 263–86.
[7] Mitchison D, Davies G. Kemoterapi tuberkulosis: masa lalu, sekarang dan masa depan. Int J Tube Lung Dis 2012;16(6):724–32.
[8] Gong W, Liang Y, Mi J, Jia Z, Xue Y, Wang J, Wang L, Zhou Y, Sun S, Wu X. Vaksin berasaskan peptida MP3RT mendorong imuniti perlindungan terhadap jangkitan Mycobacterium tuberculosis dalam model tetikus manusia. . Immunol Depan 2021;12:1–19.
[9] Lange C, Aaby P, Behr MA, Donald PR, Kaufmann SHE, Netea MG, Mandalakas AM. 100 tahun Mycobacterium bovis bacille Calmette-Guérin. Lancet Infect Dis 2022;22(1):e2–12.
[10] Glaziou P, Floyd K, Raviglione MC. Epidemiologi global tuberkulosis. Semin Respir Crit Care Med 2018;39(3):271–85.
[11] Ernst JD. Mekanisme pengelakan imun M. tuberculosis sebagai cabaran kepada reka bentuk vaksin TB. Mikrob Hos Sel 2018;24(1):34–42.
[12] Li X, Chen F, Liu X, Xiao J, Andongma BT, Tang Q, Cao X, Chou SH, Galperin MY, He J. Clp protease dan RNA antisense bersama-sama mengawal selia CarD pengawal selia global untuk mengantara tindak balas kebuluran mikobakteria. eLife 2022;11:1–22.
[13] Liu CH, Liu H, Ge B. Kekebalan semula jadi dalam tuberkulosis: pertahanan perumah vs pengelakan patogen. Sel Mol Immunol 2017;14(12):963–75.
[14] Elvang T, Christensen JP, Billeskov R, Hoang TTKT, Holst P, Thomsen AR, Andersen P, Dietrich J. CD4, dan tindak balas sel CD8 T kepada M. tuberkulosis Ag85B-TB10.4 yang dipromosikan oleh subunit adjuvan, adenovector atau vaksinasi pendorong utama heterolog. PLoS ONE 2009;4(4):e5139.
[15] Rossjohn J, Gras S, Miles JJ, Turner SJ, Godfrey DI, McCluskey J. Pengiktirafan reseptor antigen sel T bagi molekul pembentangan antigen. Annu Rev Immunol 2015;33:169–200.
For more information:1950477648nn@gmail.com


